Fundamental Research Funds for the Central Universities. YG2023QNB10 Innovative Training Program for College Students of Shanghai Jiao Tong University School of Medicine. 20260241 National Natural Science Foundation of China Promotion Project of Renji Hospital, Shanghai Jiao Tong University School of Medicine. RJTJ26-MS-017
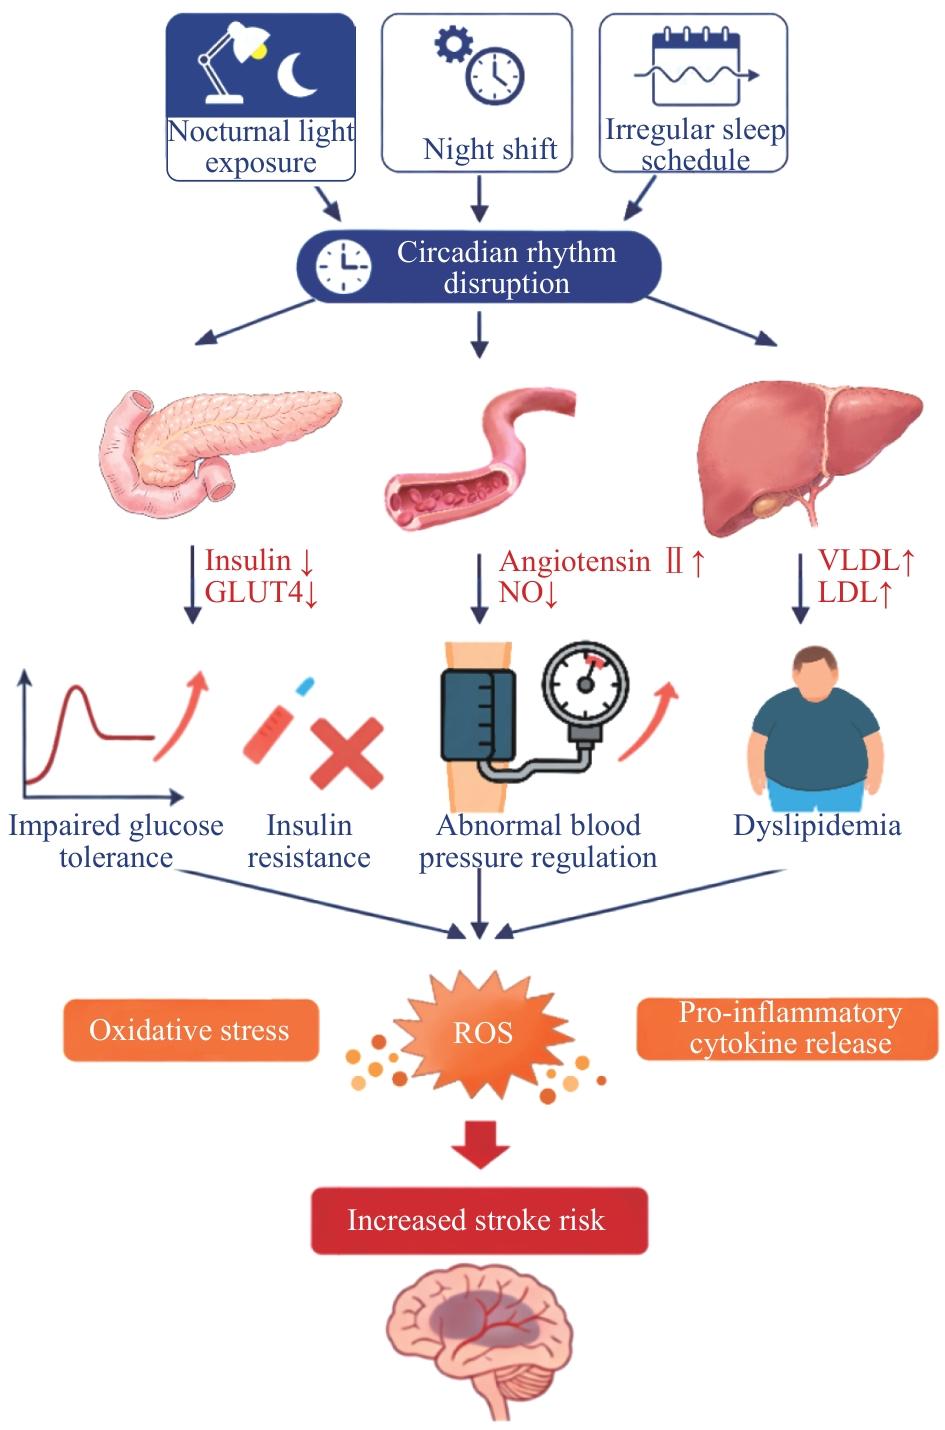
Stroke, a cerebrovascular disease characterized by focal or global brain function impairment as its core clinical feature, is associated with high incidence, disability, and mortality rates. Its onset exhibits a certain circadian rhythmicity. With the acceleration of modern life rhythms and the development of science and technology, the prevalence of night-shift work and cross-time-zone travel has increased. Meanwhile, prolonged use of electronic products and extended entertainment time have led to an increase in the number of people with circadian rhythm disorders. Existing studies have confirmed that circadian rhythm disorders are significantly associated with the risk of various diseases, such as metabolic syndrome and cardiovascular and cerebrovascular diseases. However, the specific mechanisms remain unclear. Abnormal lipid metabolism is an important risk factor for stroke, especially ischemic stroke. The processes of lipid digestion, absorption, transport, synthesis, decomposition, and oxidation in the body are precisely regulated by central and peripheral molecular clocks, showing significant temporal characteristics. Circadian rhythm disorders are closely related to abnormal lipid metabolism and atherosclerosis. This article reviews the mechanisms by which circadian rhythms regulate lipid metabolism and their role in the onset and progression of stroke, and based on this, proposes new targets for stroke chronotherapy.
Li Bei, Li Jingchen, Guo Xilang, Yu Yuansidu, Luo Yihong, Hu Qin, Gao Li. Review of circadian rhythm mechanism of lipid metabolism and its impact on the incidence of stroke. Journal of Shanghai Jiao Tong University (Medical Science)[J], 2026, 46(5): 672-679 doi:10.3969/j.issn.1674-8115.2026.05.014
众所周知,外周血脂水平受肠道吸收与肝脏生物合成的共同作用影响,而肠道吸收与肝脏生物合成皆受到昼夜节律机制的调节。研究[19]表明,小鼠肠细胞以节律性表达分子钟基因,且肠道脂质吸收效率存在昼夜波动,在活动期其效率更高,休息期更低。当对小鼠进行肠道特异性敲除分子钟基因脑和肌肉芳香烃受体核转位蛋白样蛋白1(brain and muscle ARNT-like protein 1,Bmal1)时,会导致小鼠肠内脂质再合成受损及脂肪分泌减少。与之相仿,肠内缺乏核受体亚家族1 D组受体1(nuclear receptor subfamily 1 group D member 1,Nr1d1,Rev-erbα),会增强膳食脂肪吸收,进而增加肥胖风险[20]。这表明肠道分子钟基因在脂肪的吸收过程中有着不可或缺的作用。肝脏内胆固醇合成速率也有一定的昼夜节律性。早期研究[21]证实,肝脏内羟甲基戊二酰辅酶A(3-hydroxy-3-methylglutaryl-coenzyme A,HMG-CoA)还原酶(体内生物合成胆固醇过程当中的限速酶)的活性在夜间处于最高水平,日间则降至最低水平。一项针对8名遵循标准饮食的志愿者血清中的7-烯胆甾烷醇(一种体内胆固醇合成的循环标志物)的全天候评估显示,其浓度呈现出明确的昼夜节律性,在夜间达到峰值[22]。与之相仿,TG合成同样受昼夜节律的调控。小鼠肝脏的脂质组学分析表明,TG的积累具有昼夜节律性,且参与TG生物合成的多种酶,包括甘油-3-磷酸酰基转移酶(glycerol-3-phosphate acyltransferase,GPAT),1-酰基甘油-3-磷酸酰基转移酶(1-acylglycerol-3-phosphate acyltransferase,AGPAT)和二酰基甘油酰基转移酶(diacylglycerol acyltransferase,DGAT),其表达均呈现昼夜振荡[23]。
此外,近年来的研究进一步发现,脂肪酸合成与降解途径同样受到昼夜节律的调控。乙酰辅酶A作为棕榈酸生物合成以及脂肪酸链延长的主要底物,其浓度呈现出昼夜节律性波动,这一过程由乙酰辅酶A合成酶1(acetyl-CoA synthetase 1,AceCS1)的节律性活性变化驱动[24]。同时,参与长链脂肪酸在细胞内β-氧化的关键酶,如肉碱棕榈酰转移酶1(carnitine-palmitoyl transferase 1,CPT1)及极长链酰基辅酶 A 脱氢酶11(very long-chain acyl-CoA dehydrogenase,VLCAD),其表达水平与活性均呈现出昼夜节律性[25]。这些现象均表明,血脂代谢的昼夜节律性受内源性生物钟系统的调控。
2.2 昼夜节律对脂质消化吸收、运输、合成、分解及氧化过程的调控及机制
2.2.1 昼夜节律对脂质消化吸收的调控
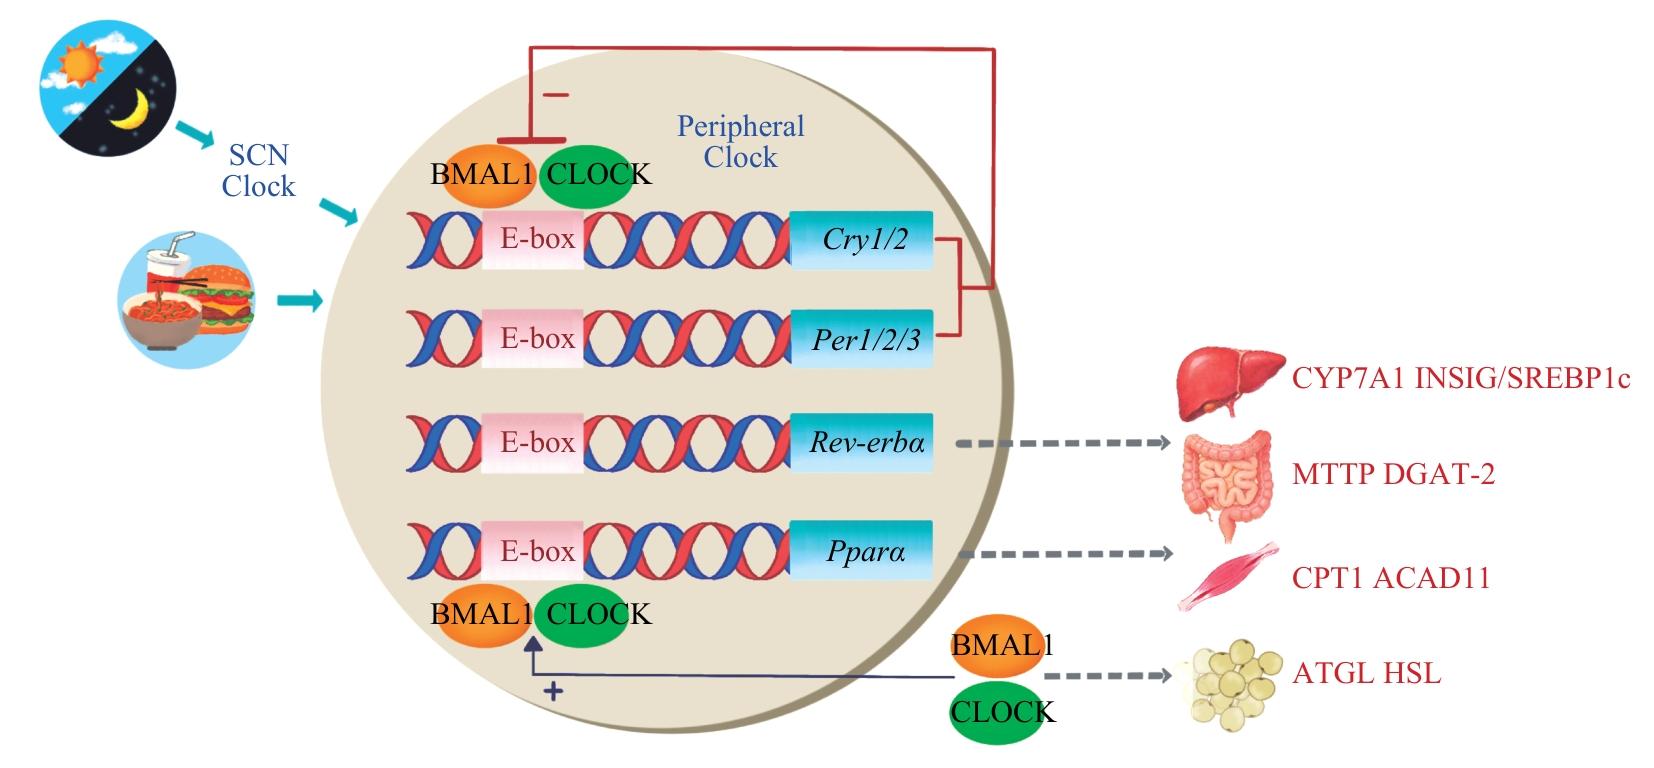
昼夜节律系统借助一套精密的转录—翻译反馈环路,从分子层面精准协调脂质代谢的各个关键环节,涵盖脂质的消化与吸收、运输、细胞内生物合成、分解以及氧化,以此维持全身的脂质稳态(图2)。脂质的消化与吸收是全身脂质代谢的起始步骤。研究[26]表明,该过程受到昼夜节律的严格调控。作为脂质乳化的关键物质,胆汁酸在肝脏中的合成受到核心分子钟的高度调控。研究[27]表明,REV-ERBα蛋白驱动胆固醇转化为胆汁酸的限速酶——胆固醇-7α-羟化酶(cytochrome P450 family 7 subfamily A member 1,CYP7A1)呈现节律性表达,使其活性高峰与进食期吻合,保障脂质的有效乳化,为后续吸收做准备。在缺乏REV-ERBα蛋白的小鼠体内,CYP7A1的表达峰值消失,且胆汁酸的合成和排泄均受损。与此同时,小肠作为膳食脂肪吸收的主要场所,其肠细胞内的外周分子钟通过Bmal1、Rev-erbα等核心时钟基因的节律性转录与翻译,直接调控微粒体甘油三酯转运蛋白(microsomal triglyceride transfer protein,Mttp)、二酰基甘油酰基转移酶2(diacylglycerol acyltransferase 2,Dgat2)等关键基因的节律性表达,使肠道脂质吸收与再合成效率在活动期达到峰值[20,28]。这种由核心分子钟主导的调控并非仅局限于转录启动层面,还涉及染色质状态的表观遗传重塑。研究[29]发现,REV-ERBα蛋白在调控胆汁酸及TG代谢时,需招募组蛋白脱乙酰酶3(histone deacetylase 3,HDAC3)形成共抑制复合物。该复合物在基因组范围内呈现出显著的节律性募集特征,通过介导胆汁酸合成限速酶和TG合成限速酶等关键基因启动子区的组蛋白去乙酰化,精细锁定了这些脂质代谢限速酶的表达窗口。这种表观遗传层面的“节律门控”机制,确保了脂质消化过程能与机体的进食行为在时空上实现高度精准的同步[30]。
与此同时,细胞内脂质合成是一个尤为复杂的协同过程,分子钟通过多层级修饰对其加以调控[7]。甾醇调节元件结合蛋白1c(sterol regulatory element-binding protein 1c,SREBP1c)是脂肪酸和TG合成途径的关键转录因子。SREBP1c的活性不仅受到钟控基因胰岛素诱导基因(insulin induced gene,Insig)的隔离调控,还高度依赖于翻译后的乙酰化与磷酸化修饰。一方面,作为代谢感知因子的去乙酰化酶1(sirtuin 1,SIRT1)和去乙酰化酶6(sirtuin 6,SIRT6),它们所介导的节律性去乙酰化作用,能精确调节AceCS1的活性,以及固醇调节元件结合蛋白-1c(sterol regulatory element-binding protein 1c,SREBP-1c)在染色质上的募集效率,以此驱动脂肪酸及胆固醇合成的日间节律[28]。另一方面,AMP激活的蛋白激酶(AMP-activated protein kinase,AMPK)能够通过磷酸化核心分子钟蛋白隐花色素蛋白(cryptochrome,CRY),改变脂质合成相关酶的磷酸化状态,将细胞能量稳态信息反馈至脂质合成通路[8]。此外,胆固醇合成的限速酶HMG-CoA还原酶以及胆汁酸合成的关键酶CYP7A1的表达,同样受分子钟的调控[6,21]。
“时间疗法”作为一种基于人体生物钟节律的治疗策略,其实施方式有二:其一,通过改变患者的睡眠-觉醒节律,以达到预防或治疗疾病的目的;其二,依据患者的昼夜节律特点,合理调整治疗时机,进而提高治疗效果[41]。针对昼夜节律失调引起的血脂异常,目前的治疗策略主要包括改善睡眠质量、调整作息时间,以及使用药物调节脂质代谢。在药物治疗领域,如他汀类药物、前蛋白转化酶枯草溶菌素9(proprotein convertase subtilisin/kexin type 9,PCSK9)抑制剂等降脂药物已得到广泛应用,并显示出显著的降脂效果。近年来,大量证据表明,这些药物不仅能够有效降低胆固醇水平,还能改善血管功能,减少脑卒中的发生风险[42-43]。
Li Bei, Gao Li, and Hu Qin were responsible for the design and implementation of the research, as well as the drafting and revision the manuscript. Li Bei, Li Jingchen, Guo Xilang, Yu Yuansidu, and Luo Yihong contributed to literature review, manuscript drafting, and revision. All authors have read and approved the final version of the manuscript for publication.
利益冲突声明
所有作者声明不存在利益冲突。
Conflict of Interests
All authors declare no relevant conflict of interests.
Feigin V L, Stark B, Johnson C O, et al. Global, regional, and national burden of stroke and its risk factors, 1990-2019: a systematic analysis for the Global Burden of Disease Study 2019[J]. Lancet Neurol, 2021, 20(10): 795-820.
Ramsey A M, Stowie A, Castanon-Cervantes O, et al. Environmental circadian disruption increases stroke severity and dysregulates immune response[J]. J Biol Rhythms, 2020, 35(4): 368-376.
Xiao Y, Li Y, Gu J N, et al. Circadian rhythm gene cryptochrome 2 (Cry2) interacts with lipid metabolism to promote vascular aging[J]. Arch Gerontol Geriatr, 2025, 131: 105761.
Fodor D M, Marta M M, Perju-Dumbravă L. Implications of circadian rhythm in stroke occurrence: certainties and possibilities[J]. Brain Sci, 2021, 11(7): 865.
Reidler P, Brehm A, Sporns P B, et al. Circadian rhythm of ischaemic core progression in human stroke[J]. J Neurol Neurosurg Psychiatry, 2023, 94(1): 70-73.
Ryu W S, Hong K S, Jeong S W, et al. Association of ischemic stroke onset time with presenting severity, acute progression, and long-term outcome: a cohort study[J]. PLoS Med, 2022, 19(2): e1003910.
Kamat P K, Khan M B, Smith C, et al. The time dimension to stroke: circadian effects on stroke outcomes and mechanisms[J]. Neurochem Int, 2023, 162: 105457.
Pan X, Hussain M M. Diurnal regulation of microsomal triglyceride transfer protein and plasma lipid levels[J]. J Biol Chem, 2007, 282(34): 24707-24719.
Hayashi T, Ai M, Goto S, et al. Circadian rhythm of subspecies of low-density lipoprotein-cholesterol and high-density lipoprotein-cholesterol in healthy subjects and patients with type 2 diabetes[J]. J Atheroscler Thromb, 2023, 30(1): 3-14.
Escobar C, Díaz-Muñoz M, Encinas F, et al. Persistence of metabolic rhythmicity during fasting and its entrainment by restricted feeding schedules in rats[J]. Am J Physiol, 1998, 274(5): R1309-R1316.
Balakrishnan A, Tavakkolizadeh A, Rhoads D B. Circadian clock genes and implications for intestinal nutrient uptake[J]. J Nutr Biochem, 2012, 23(5): 417-422.
Shapiro D J, Rodwell V W. Diurnal variation and cholesterol regulation of hepatic HMG-CoA reductase activity[J]. Biochem Biophys Res Commun, 1969, 37(5): 867-872.
Gälman C, Angelin B, Rudling M. Bile acid synthesis in humans has a rapid diurnal variation that is asynchronous with cholesterol synthesis[J]. Gastroenterology, 2005, 129(5): 1445-1453.
Adamovich Y, Rousso-Noori L, Zwighaft Z, et al. Circadian clocks and feeding time regulate the oscillations and levels of hepatic triglycerides[J]. Cell Metab, 2014, 19(2): 319-330.
Sahar S, Masubuchi S, Eckel-Mahan K, et al. Circadian control of fatty acid elongation by SIRT1 protein-mediated deacetylation of acetyl-coenzyme A synthetase 1[J]. J Biol Chem, 2014, 289(9): 6091-6097.
Manoogian E N, Panda S. Circadian clock, nutrient quality, and eating pattern tune diurnal rhythms in the mitochondrial proteome[J]. Proc Natl Acad Sci U S A, 2016, 113(12): 3127-3129.
Pan X, O'Hare J, Mowdawalla C, et al. Bmal1 is involved in the regulation of macrophage cholesterol homeostasis[J]. JCI Insight, 2025, 10(21): e194304.
Li X H, He Y J, Wang D W, et al. Chronobiological disruptions: unravelling the interplay of shift work, circadian rhythms, and vascular health in the context of stroke risk[J]. Clin Exp Med, 2024, 25(1): 6.
Gaggini M, Gorini F, Vassalle C. Lipids in atherosclerosis: pathophysiology and the role of calculated lipid indices in assessing cardiovascular risk in patients with hyperlipidemia[J]. Int J Mol Sci, 2022, 24(1): 75.
Jahdkaran M, Sistanizad M. From lipids to glucose: investigating the role of dyslipidemia in the risk of insulin resistance[J]. J Steroid Biochem Mol Biol, 2025, 250: 106744.
Dąbrowska E, Narkiewicz K. Hypertension and dyslipidemia: the two partners in endothelium-related crime[J]. Curr Atheroscler Rep, 2023, 25(9): 605-612.
Akhtar N, Al-Jerdi S, Kamran S, et al. Night-time non-dipping blood pressure and heart rate: an association with the risk of silent small vessel disease in patients presenting with acute ischemic stroke[J]. Front Neurol, 2021, 12: 719311.
Zhou X, Gu Y Q, Li L. Oxidative stress and inflammatory response in cerebral infarction due to hyperlipidemia and lipid-lowering, anti-inflammatory, and antioxidant therapy[J]. J Neurol Sci, 2025, 476: 123620.
Kim J H, Choi K H, Kang K W, et al. Impact of visceral adipose tissue on clinical outcomes after acute ischemic stroke[J]. Stroke, 2019, 50(2): 448-454.
Saposnik G, Fonarow G C, Pan W, et al. Guideline-directed low-density lipoprotein management in high-risk patients with ischemic stroke: findings from Get with the Guidelines-Stroke 2003 to 2012[J]. Stroke, 2014, 45(11): 3343-3351.
Vujović N, Piron M J, Qian J Y, et al. Late isocaloric eating increases hunger, decreases energy expenditure, and modifies metabolic pathways in adults with overweight and obesity[J]. Cell Metab, 2022, 34(10): 1486-1498.e7.
Liu L L, Chen W, Wu D, et al. Metabolic efficacy of time-restricted eating in adults: a systematic review and meta-analysis of randomized controlled trials[J]. J Clin Endocrinol Metab, 2022, 107(12): 3428-3441.
Wang C, Quan Y W, Wang L F, et al. Effect of timing of administration on lipid-lowering efficacy of statins-meta-analysis[J]. Eur J Clin Pharmacol, 2023, 79(12): 1641-1656.
Minami M, Kimura S, Endo T, et al. Effects of dietary docosahexaenoic acid on survival time and stroke-related behavior in stroke-prone spontaneously hypertensive rats[J]. Gen Pharmacol, 1997, 29(3): 401-407.
Vilas D, Gomis M, Blanco M, et al. Circadian rhythms in the efficacy of intravenous alteplase in patients with acute ischemic stroke and middle cerebral artery occlusion[J]. Chronobiol Int, 2012, 29(10): 1383-1389.
... 众所周知,外周血脂水平受肠道吸收与肝脏生物合成的共同作用影响,而肠道吸收与肝脏生物合成皆受到昼夜节律机制的调节.研究[19]表明,小鼠肠细胞以节律性表达分子钟基因,且肠道脂质吸收效率存在昼夜波动,在活动期其效率更高,休息期更低.当对小鼠进行肠道特异性敲除分子钟基因脑和肌肉芳香烃受体核转位蛋白样蛋白1(brain and muscle ARNT-like protein 1,Bmal1)时,会导致小鼠肠内脂质再合成受损及脂肪分泌减少.与之相仿,肠内缺乏核受体亚家族1 D组受体1(nuclear receptor subfamily 1 group D member 1,Nr1d1,Rev-erbα),会增强膳食脂肪吸收,进而增加肥胖风险[20].这表明肠道分子钟基因在脂肪的吸收过程中有着不可或缺的作用.肝脏内胆固醇合成速率也有一定的昼夜节律性.早期研究[21]证实,肝脏内羟甲基戊二酰辅酶A(3-hydroxy-3-methylglutaryl-coenzyme A,HMG-CoA)还原酶(体内生物合成胆固醇过程当中的限速酶)的活性在夜间处于最高水平,日间则降至最低水平.一项针对8名遵循标准饮食的志愿者血清中的7-烯胆甾烷醇(一种体内胆固醇合成的循环标志物)的全天候评估显示,其浓度呈现出明确的昼夜节律性,在夜间达到峰值[22].与之相仿,TG合成同样受昼夜节律的调控.小鼠肝脏的脂质组学分析表明,TG的积累具有昼夜节律性,且参与TG生物合成的多种酶,包括甘油-3-磷酸酰基转移酶(glycerol-3-phosphate acyltransferase,GPAT),1-酰基甘油-3-磷酸酰基转移酶(1-acylglycerol-3-phosphate acyltransferase,AGPAT)和二酰基甘油酰基转移酶(diacylglycerol acyltransferase,DGAT),其表达均呈现昼夜振荡[23]. ...
2
... 众所周知,外周血脂水平受肠道吸收与肝脏生物合成的共同作用影响,而肠道吸收与肝脏生物合成皆受到昼夜节律机制的调节.研究[19]表明,小鼠肠细胞以节律性表达分子钟基因,且肠道脂质吸收效率存在昼夜波动,在活动期其效率更高,休息期更低.当对小鼠进行肠道特异性敲除分子钟基因脑和肌肉芳香烃受体核转位蛋白样蛋白1(brain and muscle ARNT-like protein 1,Bmal1)时,会导致小鼠肠内脂质再合成受损及脂肪分泌减少.与之相仿,肠内缺乏核受体亚家族1 D组受体1(nuclear receptor subfamily 1 group D member 1,Nr1d1,Rev-erbα),会增强膳食脂肪吸收,进而增加肥胖风险[20].这表明肠道分子钟基因在脂肪的吸收过程中有着不可或缺的作用.肝脏内胆固醇合成速率也有一定的昼夜节律性.早期研究[21]证实,肝脏内羟甲基戊二酰辅酶A(3-hydroxy-3-methylglutaryl-coenzyme A,HMG-CoA)还原酶(体内生物合成胆固醇过程当中的限速酶)的活性在夜间处于最高水平,日间则降至最低水平.一项针对8名遵循标准饮食的志愿者血清中的7-烯胆甾烷醇(一种体内胆固醇合成的循环标志物)的全天候评估显示,其浓度呈现出明确的昼夜节律性,在夜间达到峰值[22].与之相仿,TG合成同样受昼夜节律的调控.小鼠肝脏的脂质组学分析表明,TG的积累具有昼夜节律性,且参与TG生物合成的多种酶,包括甘油-3-磷酸酰基转移酶(glycerol-3-phosphate acyltransferase,GPAT),1-酰基甘油-3-磷酸酰基转移酶(1-acylglycerol-3-phosphate acyltransferase,AGPAT)和二酰基甘油酰基转移酶(diacylglycerol acyltransferase,DGAT),其表达均呈现昼夜振荡[23]. ...
... 昼夜节律系统借助一套精密的转录—翻译反馈环路,从分子层面精准协调脂质代谢的各个关键环节,涵盖脂质的消化与吸收、运输、细胞内生物合成、分解以及氧化,以此维持全身的脂质稳态(图2).脂质的消化与吸收是全身脂质代谢的起始步骤.研究[26]表明,该过程受到昼夜节律的严格调控.作为脂质乳化的关键物质,胆汁酸在肝脏中的合成受到核心分子钟的高度调控.研究[27]表明,REV-ERBα蛋白驱动胆固醇转化为胆汁酸的限速酶——胆固醇-7α-羟化酶(cytochrome P450 family 7 subfamily A member 1,CYP7A1)呈现节律性表达,使其活性高峰与进食期吻合,保障脂质的有效乳化,为后续吸收做准备.在缺乏REV-ERBα蛋白的小鼠体内,CYP7A1的表达峰值消失,且胆汁酸的合成和排泄均受损.与此同时,小肠作为膳食脂肪吸收的主要场所,其肠细胞内的外周分子钟通过Bmal1、Rev-erbα等核心时钟基因的节律性转录与翻译,直接调控微粒体甘油三酯转运蛋白(microsomal triglyceride transfer protein,Mttp)、二酰基甘油酰基转移酶2(diacylglycerol acyltransferase 2,Dgat2)等关键基因的节律性表达,使肠道脂质吸收与再合成效率在活动期达到峰值[20,28].这种由核心分子钟主导的调控并非仅局限于转录启动层面,还涉及染色质状态的表观遗传重塑.研究[29]发现,REV-ERBα蛋白在调控胆汁酸及TG代谢时,需招募组蛋白脱乙酰酶3(histone deacetylase 3,HDAC3)形成共抑制复合物.该复合物在基因组范围内呈现出显著的节律性募集特征,通过介导胆汁酸合成限速酶和TG合成限速酶等关键基因启动子区的组蛋白去乙酰化,精细锁定了这些脂质代谢限速酶的表达窗口.这种表观遗传层面的“节律门控”机制,确保了脂质消化过程能与机体的进食行为在时空上实现高度精准的同步[30]. ...
2
... 众所周知,外周血脂水平受肠道吸收与肝脏生物合成的共同作用影响,而肠道吸收与肝脏生物合成皆受到昼夜节律机制的调节.研究[19]表明,小鼠肠细胞以节律性表达分子钟基因,且肠道脂质吸收效率存在昼夜波动,在活动期其效率更高,休息期更低.当对小鼠进行肠道特异性敲除分子钟基因脑和肌肉芳香烃受体核转位蛋白样蛋白1(brain and muscle ARNT-like protein 1,Bmal1)时,会导致小鼠肠内脂质再合成受损及脂肪分泌减少.与之相仿,肠内缺乏核受体亚家族1 D组受体1(nuclear receptor subfamily 1 group D member 1,Nr1d1,Rev-erbα),会增强膳食脂肪吸收,进而增加肥胖风险[20].这表明肠道分子钟基因在脂肪的吸收过程中有着不可或缺的作用.肝脏内胆固醇合成速率也有一定的昼夜节律性.早期研究[21]证实,肝脏内羟甲基戊二酰辅酶A(3-hydroxy-3-methylglutaryl-coenzyme A,HMG-CoA)还原酶(体内生物合成胆固醇过程当中的限速酶)的活性在夜间处于最高水平,日间则降至最低水平.一项针对8名遵循标准饮食的志愿者血清中的7-烯胆甾烷醇(一种体内胆固醇合成的循环标志物)的全天候评估显示,其浓度呈现出明确的昼夜节律性,在夜间达到峰值[22].与之相仿,TG合成同样受昼夜节律的调控.小鼠肝脏的脂质组学分析表明,TG的积累具有昼夜节律性,且参与TG生物合成的多种酶,包括甘油-3-磷酸酰基转移酶(glycerol-3-phosphate acyltransferase,GPAT),1-酰基甘油-3-磷酸酰基转移酶(1-acylglycerol-3-phosphate acyltransferase,AGPAT)和二酰基甘油酰基转移酶(diacylglycerol acyltransferase,DGAT),其表达均呈现昼夜振荡[23]. ...
... 与此同时,细胞内脂质合成是一个尤为复杂的协同过程,分子钟通过多层级修饰对其加以调控[7].甾醇调节元件结合蛋白1c(sterol regulatory element-binding protein 1c,SREBP1c)是脂肪酸和TG合成途径的关键转录因子.SREBP1c的活性不仅受到钟控基因胰岛素诱导基因(insulin induced gene,Insig)的隔离调控,还高度依赖于翻译后的乙酰化与磷酸化修饰.一方面,作为代谢感知因子的去乙酰化酶1(sirtuin 1,SIRT1)和去乙酰化酶6(sirtuin 6,SIRT6),它们所介导的节律性去乙酰化作用,能精确调节AceCS1的活性,以及固醇调节元件结合蛋白-1c(sterol regulatory element-binding protein 1c,SREBP-1c)在染色质上的募集效率,以此驱动脂肪酸及胆固醇合成的日间节律[28].另一方面,AMP激活的蛋白激酶(AMP-activated protein kinase,AMPK)能够通过磷酸化核心分子钟蛋白隐花色素蛋白(cryptochrome,CRY),改变脂质合成相关酶的磷酸化状态,将细胞能量稳态信息反馈至脂质合成通路[8].此外,胆固醇合成的限速酶HMG-CoA还原酶以及胆汁酸合成的关键酶CYP7A1的表达,同样受分子钟的调控[6,21]. ...
1
... 众所周知,外周血脂水平受肠道吸收与肝脏生物合成的共同作用影响,而肠道吸收与肝脏生物合成皆受到昼夜节律机制的调节.研究[19]表明,小鼠肠细胞以节律性表达分子钟基因,且肠道脂质吸收效率存在昼夜波动,在活动期其效率更高,休息期更低.当对小鼠进行肠道特异性敲除分子钟基因脑和肌肉芳香烃受体核转位蛋白样蛋白1(brain and muscle ARNT-like protein 1,Bmal1)时,会导致小鼠肠内脂质再合成受损及脂肪分泌减少.与之相仿,肠内缺乏核受体亚家族1 D组受体1(nuclear receptor subfamily 1 group D member 1,Nr1d1,Rev-erbα),会增强膳食脂肪吸收,进而增加肥胖风险[20].这表明肠道分子钟基因在脂肪的吸收过程中有着不可或缺的作用.肝脏内胆固醇合成速率也有一定的昼夜节律性.早期研究[21]证实,肝脏内羟甲基戊二酰辅酶A(3-hydroxy-3-methylglutaryl-coenzyme A,HMG-CoA)还原酶(体内生物合成胆固醇过程当中的限速酶)的活性在夜间处于最高水平,日间则降至最低水平.一项针对8名遵循标准饮食的志愿者血清中的7-烯胆甾烷醇(一种体内胆固醇合成的循环标志物)的全天候评估显示,其浓度呈现出明确的昼夜节律性,在夜间达到峰值[22].与之相仿,TG合成同样受昼夜节律的调控.小鼠肝脏的脂质组学分析表明,TG的积累具有昼夜节律性,且参与TG生物合成的多种酶,包括甘油-3-磷酸酰基转移酶(glycerol-3-phosphate acyltransferase,GPAT),1-酰基甘油-3-磷酸酰基转移酶(1-acylglycerol-3-phosphate acyltransferase,AGPAT)和二酰基甘油酰基转移酶(diacylglycerol acyltransferase,DGAT),其表达均呈现昼夜振荡[23]. ...
1
... 众所周知,外周血脂水平受肠道吸收与肝脏生物合成的共同作用影响,而肠道吸收与肝脏生物合成皆受到昼夜节律机制的调节.研究[19]表明,小鼠肠细胞以节律性表达分子钟基因,且肠道脂质吸收效率存在昼夜波动,在活动期其效率更高,休息期更低.当对小鼠进行肠道特异性敲除分子钟基因脑和肌肉芳香烃受体核转位蛋白样蛋白1(brain and muscle ARNT-like protein 1,Bmal1)时,会导致小鼠肠内脂质再合成受损及脂肪分泌减少.与之相仿,肠内缺乏核受体亚家族1 D组受体1(nuclear receptor subfamily 1 group D member 1,Nr1d1,Rev-erbα),会增强膳食脂肪吸收,进而增加肥胖风险[20].这表明肠道分子钟基因在脂肪的吸收过程中有着不可或缺的作用.肝脏内胆固醇合成速率也有一定的昼夜节律性.早期研究[21]证实,肝脏内羟甲基戊二酰辅酶A(3-hydroxy-3-methylglutaryl-coenzyme A,HMG-CoA)还原酶(体内生物合成胆固醇过程当中的限速酶)的活性在夜间处于最高水平,日间则降至最低水平.一项针对8名遵循标准饮食的志愿者血清中的7-烯胆甾烷醇(一种体内胆固醇合成的循环标志物)的全天候评估显示,其浓度呈现出明确的昼夜节律性,在夜间达到峰值[22].与之相仿,TG合成同样受昼夜节律的调控.小鼠肝脏的脂质组学分析表明,TG的积累具有昼夜节律性,且参与TG生物合成的多种酶,包括甘油-3-磷酸酰基转移酶(glycerol-3-phosphate acyltransferase,GPAT),1-酰基甘油-3-磷酸酰基转移酶(1-acylglycerol-3-phosphate acyltransferase,AGPAT)和二酰基甘油酰基转移酶(diacylglycerol acyltransferase,DGAT),其表达均呈现昼夜振荡[23]. ...
... 昼夜节律系统借助一套精密的转录—翻译反馈环路,从分子层面精准协调脂质代谢的各个关键环节,涵盖脂质的消化与吸收、运输、细胞内生物合成、分解以及氧化,以此维持全身的脂质稳态(图2).脂质的消化与吸收是全身脂质代谢的起始步骤.研究[26]表明,该过程受到昼夜节律的严格调控.作为脂质乳化的关键物质,胆汁酸在肝脏中的合成受到核心分子钟的高度调控.研究[27]表明,REV-ERBα蛋白驱动胆固醇转化为胆汁酸的限速酶——胆固醇-7α-羟化酶(cytochrome P450 family 7 subfamily A member 1,CYP7A1)呈现节律性表达,使其活性高峰与进食期吻合,保障脂质的有效乳化,为后续吸收做准备.在缺乏REV-ERBα蛋白的小鼠体内,CYP7A1的表达峰值消失,且胆汁酸的合成和排泄均受损.与此同时,小肠作为膳食脂肪吸收的主要场所,其肠细胞内的外周分子钟通过Bmal1、Rev-erbα等核心时钟基因的节律性转录与翻译,直接调控微粒体甘油三酯转运蛋白(microsomal triglyceride transfer protein,Mttp)、二酰基甘油酰基转移酶2(diacylglycerol acyltransferase 2,Dgat2)等关键基因的节律性表达,使肠道脂质吸收与再合成效率在活动期达到峰值[20,28].这种由核心分子钟主导的调控并非仅局限于转录启动层面,还涉及染色质状态的表观遗传重塑.研究[29]发现,REV-ERBα蛋白在调控胆汁酸及TG代谢时,需招募组蛋白脱乙酰酶3(histone deacetylase 3,HDAC3)形成共抑制复合物.该复合物在基因组范围内呈现出显著的节律性募集特征,通过介导胆汁酸合成限速酶和TG合成限速酶等关键基因启动子区的组蛋白去乙酰化,精细锁定了这些脂质代谢限速酶的表达窗口.这种表观遗传层面的“节律门控”机制,确保了脂质消化过程能与机体的进食行为在时空上实现高度精准的同步[30]. ...
... 昼夜节律系统借助一套精密的转录—翻译反馈环路,从分子层面精准协调脂质代谢的各个关键环节,涵盖脂质的消化与吸收、运输、细胞内生物合成、分解以及氧化,以此维持全身的脂质稳态(图2).脂质的消化与吸收是全身脂质代谢的起始步骤.研究[26]表明,该过程受到昼夜节律的严格调控.作为脂质乳化的关键物质,胆汁酸在肝脏中的合成受到核心分子钟的高度调控.研究[27]表明,REV-ERBα蛋白驱动胆固醇转化为胆汁酸的限速酶——胆固醇-7α-羟化酶(cytochrome P450 family 7 subfamily A member 1,CYP7A1)呈现节律性表达,使其活性高峰与进食期吻合,保障脂质的有效乳化,为后续吸收做准备.在缺乏REV-ERBα蛋白的小鼠体内,CYP7A1的表达峰值消失,且胆汁酸的合成和排泄均受损.与此同时,小肠作为膳食脂肪吸收的主要场所,其肠细胞内的外周分子钟通过Bmal1、Rev-erbα等核心时钟基因的节律性转录与翻译,直接调控微粒体甘油三酯转运蛋白(microsomal triglyceride transfer protein,Mttp)、二酰基甘油酰基转移酶2(diacylglycerol acyltransferase 2,Dgat2)等关键基因的节律性表达,使肠道脂质吸收与再合成效率在活动期达到峰值[20,28].这种由核心分子钟主导的调控并非仅局限于转录启动层面,还涉及染色质状态的表观遗传重塑.研究[29]发现,REV-ERBα蛋白在调控胆汁酸及TG代谢时,需招募组蛋白脱乙酰酶3(histone deacetylase 3,HDAC3)形成共抑制复合物.该复合物在基因组范围内呈现出显著的节律性募集特征,通过介导胆汁酸合成限速酶和TG合成限速酶等关键基因启动子区的组蛋白去乙酰化,精细锁定了这些脂质代谢限速酶的表达窗口.这种表观遗传层面的“节律门控”机制,确保了脂质消化过程能与机体的进食行为在时空上实现高度精准的同步[30]. ...
... 昼夜节律系统借助一套精密的转录—翻译反馈环路,从分子层面精准协调脂质代谢的各个关键环节,涵盖脂质的消化与吸收、运输、细胞内生物合成、分解以及氧化,以此维持全身的脂质稳态(图2).脂质的消化与吸收是全身脂质代谢的起始步骤.研究[26]表明,该过程受到昼夜节律的严格调控.作为脂质乳化的关键物质,胆汁酸在肝脏中的合成受到核心分子钟的高度调控.研究[27]表明,REV-ERBα蛋白驱动胆固醇转化为胆汁酸的限速酶——胆固醇-7α-羟化酶(cytochrome P450 family 7 subfamily A member 1,CYP7A1)呈现节律性表达,使其活性高峰与进食期吻合,保障脂质的有效乳化,为后续吸收做准备.在缺乏REV-ERBα蛋白的小鼠体内,CYP7A1的表达峰值消失,且胆汁酸的合成和排泄均受损.与此同时,小肠作为膳食脂肪吸收的主要场所,其肠细胞内的外周分子钟通过Bmal1、Rev-erbα等核心时钟基因的节律性转录与翻译,直接调控微粒体甘油三酯转运蛋白(microsomal triglyceride transfer protein,Mttp)、二酰基甘油酰基转移酶2(diacylglycerol acyltransferase 2,Dgat2)等关键基因的节律性表达,使肠道脂质吸收与再合成效率在活动期达到峰值[20,28].这种由核心分子钟主导的调控并非仅局限于转录启动层面,还涉及染色质状态的表观遗传重塑.研究[29]发现,REV-ERBα蛋白在调控胆汁酸及TG代谢时,需招募组蛋白脱乙酰酶3(histone deacetylase 3,HDAC3)形成共抑制复合物.该复合物在基因组范围内呈现出显著的节律性募集特征,通过介导胆汁酸合成限速酶和TG合成限速酶等关键基因启动子区的组蛋白去乙酰化,精细锁定了这些脂质代谢限速酶的表达窗口.这种表观遗传层面的“节律门控”机制,确保了脂质消化过程能与机体的进食行为在时空上实现高度精准的同步[30]. ...
... 昼夜节律系统借助一套精密的转录—翻译反馈环路,从分子层面精准协调脂质代谢的各个关键环节,涵盖脂质的消化与吸收、运输、细胞内生物合成、分解以及氧化,以此维持全身的脂质稳态(图2).脂质的消化与吸收是全身脂质代谢的起始步骤.研究[26]表明,该过程受到昼夜节律的严格调控.作为脂质乳化的关键物质,胆汁酸在肝脏中的合成受到核心分子钟的高度调控.研究[27]表明,REV-ERBα蛋白驱动胆固醇转化为胆汁酸的限速酶——胆固醇-7α-羟化酶(cytochrome P450 family 7 subfamily A member 1,CYP7A1)呈现节律性表达,使其活性高峰与进食期吻合,保障脂质的有效乳化,为后续吸收做准备.在缺乏REV-ERBα蛋白的小鼠体内,CYP7A1的表达峰值消失,且胆汁酸的合成和排泄均受损.与此同时,小肠作为膳食脂肪吸收的主要场所,其肠细胞内的外周分子钟通过Bmal1、Rev-erbα等核心时钟基因的节律性转录与翻译,直接调控微粒体甘油三酯转运蛋白(microsomal triglyceride transfer protein,Mttp)、二酰基甘油酰基转移酶2(diacylglycerol acyltransferase 2,Dgat2)等关键基因的节律性表达,使肠道脂质吸收与再合成效率在活动期达到峰值[20,28].这种由核心分子钟主导的调控并非仅局限于转录启动层面,还涉及染色质状态的表观遗传重塑.研究[29]发现,REV-ERBα蛋白在调控胆汁酸及TG代谢时,需招募组蛋白脱乙酰酶3(histone deacetylase 3,HDAC3)形成共抑制复合物.该复合物在基因组范围内呈现出显著的节律性募集特征,通过介导胆汁酸合成限速酶和TG合成限速酶等关键基因启动子区的组蛋白去乙酰化,精细锁定了这些脂质代谢限速酶的表达窗口.这种表观遗传层面的“节律门控”机制,确保了脂质消化过程能与机体的进食行为在时空上实现高度精准的同步[30]. ...
... 昼夜节律系统借助一套精密的转录—翻译反馈环路,从分子层面精准协调脂质代谢的各个关键环节,涵盖脂质的消化与吸收、运输、细胞内生物合成、分解以及氧化,以此维持全身的脂质稳态(图2).脂质的消化与吸收是全身脂质代谢的起始步骤.研究[26]表明,该过程受到昼夜节律的严格调控.作为脂质乳化的关键物质,胆汁酸在肝脏中的合成受到核心分子钟的高度调控.研究[27]表明,REV-ERBα蛋白驱动胆固醇转化为胆汁酸的限速酶——胆固醇-7α-羟化酶(cytochrome P450 family 7 subfamily A member 1,CYP7A1)呈现节律性表达,使其活性高峰与进食期吻合,保障脂质的有效乳化,为后续吸收做准备.在缺乏REV-ERBα蛋白的小鼠体内,CYP7A1的表达峰值消失,且胆汁酸的合成和排泄均受损.与此同时,小肠作为膳食脂肪吸收的主要场所,其肠细胞内的外周分子钟通过Bmal1、Rev-erbα等核心时钟基因的节律性转录与翻译,直接调控微粒体甘油三酯转运蛋白(microsomal triglyceride transfer protein,Mttp)、二酰基甘油酰基转移酶2(diacylglycerol acyltransferase 2,Dgat2)等关键基因的节律性表达,使肠道脂质吸收与再合成效率在活动期达到峰值[20,28].这种由核心分子钟主导的调控并非仅局限于转录启动层面,还涉及染色质状态的表观遗传重塑.研究[29]发现,REV-ERBα蛋白在调控胆汁酸及TG代谢时,需招募组蛋白脱乙酰酶3(histone deacetylase 3,HDAC3)形成共抑制复合物.该复合物在基因组范围内呈现出显著的节律性募集特征,通过介导胆汁酸合成限速酶和TG合成限速酶等关键基因启动子区的组蛋白去乙酰化,精细锁定了这些脂质代谢限速酶的表达窗口.这种表观遗传层面的“节律门控”机制,确保了脂质消化过程能与机体的进食行为在时空上实现高度精准的同步[30]. ...