


泛素特异性肽酶38(ubiquitin-specific peptidase 38,USP38)是USP家族去泛素化酶的重要成员,含有保守的半胱氨酸盒(cysteine box,Cys-box)和组氨酸盒(histidine box,His-box)催化结构域,能够通过调控底物蛋白稳定性,广泛参与DNA损伤修复、缺氧应答、免疫炎症等关键生物学过程[5-6]。近年研究[7-10]发现,USP38的表达及其酶活性在恶性肿瘤、心血管疾病、免疫炎症、脂质代谢及病毒感染中表现出复杂调节作用。在分子水平上,USP38不仅直接去泛素化稳定多种转录因子和信号分子,还可通过对组蛋白H2B的去泛素化修饰影响下游基因转录活性[11]。此外,USP38的表达亦受到复杂的上游调控:如腺苷脱氨酶RNA特异性酶(adenosine deaminase acting on RNA,ADAR)通过非RNA编辑依赖方式促进其自动去泛素化以维持蛋白稳定[12],而甲基转移酶样14(methyltransferase-like 14,METTL14)介导的N6-甲基腺苷(N6-methyladenosine,m6A)修饰则在转录水平影响其信使核糖核酸(messenger ribonucleic acid,mRNA)的稳定性[13]。USP38在不同肿瘤中呈现功能异质性:在肾癌、结直肠癌中发挥抑癌作用,而在膀胱癌、肺癌中则促进肿瘤进展[13-16]。新近研究[17]揭示了USP38在胃癌中的促癌作用,证实其通过稳定鼠双微体2(murine double minute 2,MDM2)下调肿瘤蛋白p53(tumor protein p53,p53)信号通路,进而抑制铁死亡并促进肿瘤增殖。然而,胃癌的恶性演进是一个多因素、多通路协同驱动的复杂过程。尽管USP38与p53轴的关联已被初步阐明,但该基因是否通过调控其他网络来发挥促癌功能,目前尚缺乏系统研究。
1 材料与方法
1.1 临床样本与细胞株培养
收集上海交通大学医学院附属第一人民医院胃肠外科接受外科手术治疗的50例胃癌患者的肿瘤及癌旁组织标本,经液氮速冻后保存于-80 ℃冰箱,用于后续RNA提取。
实验所用人胚胎肾细胞(HEK-293T)、人永生化胃黏膜上皮细胞(GES-1)以及人胃癌细胞系(AGS、HGC-27、MKN-45、SNU-1、MKN-28、KATO-3、MGC-803)均为实验室保存。HEK-293T细胞用DMEM高糖培养基(含10%胎牛血清及1%青霉素-链霉素双抗)培养。GES-1及胃癌细胞用RPMI-1640培养基(含10%胎牛血清及1%双抗)培养。所有细胞均置于37 ℃、含5%二氧化碳的细胞培养箱中。
1.2 主要试剂与仪器
USP38兔多克隆抗体(17767-1-AP)、增殖标志物Ki-67兔多克隆抗体(27309-1-AP)、p53兔多克隆抗体(10442-1-AP)、增殖细胞核抗原(proliferating cell nuclear antigen,PCNA)兔多克隆抗体(10205-2-AP)、N-钙黏蛋白(N-cadherin)兔多克隆抗体(22018-1-AP)、波形蛋白(vimentin)兔多克隆抗体(10366-1-AP)均购自武汉三鹰生物技术有限公司,RBM14兔多克隆抗体(A13159)及β-肌动蛋白(β-actin)兔单克隆抗体(AC026)均购自武汉爱博泰克生物科技有限公司,辣根过氧化物酶标记的山羊抗兔二抗(G-21234)购自美国Invitrogen。RPMI-1640培养基、DMEM培养基、胎牛血清、Trizol试剂、细胞计数试剂盒-8(cell counting kit-8,CCK-8)及增强化学发光液均购自南京诺唯赞生物科技股份有限公司。放线菌酮(cycloheximide,CHX)、蛋白酶体抑制剂MG132、DpnⅠ限制性内切酶购自上海皓元生物医药科技有限公司,KOD PLUS聚合酶购自日本TOYOBO,质粒小量制备试剂盒购自苏州优逸兰迪生物科技有限公司,凝胶回收试剂盒及5-乙炔基-2'-脱氧尿苷(5-ethynyl-2'- deoxyuridine,EdU)试剂盒均购自上海碧云天生物技术股份有限公司。聚乙烯亚胺转染试剂购自武汉三鹰生物技术有限公司。聚合酶链式反应(PCR)引物和pCDH-RBM14质粒由苏州金唯智生物科技有限公司合成。
Mateo FL型倒置荧光显微镜(Leica,德国),PCR扩增仪、NanoDrop分光光度计、QuantStudio 6型实时荧光定量PCR仪(Thermo Fisher Scientific,美国),全自动化学发光成像仪(上海天能科技有限公司),多功能酶标仪(Molecular Devices,美国)。
1.3 蛋白质印迹法
收集细胞,加入含蛋白酶抑制剂的放射免疫沉淀裂解液(radioimmunoprecipitation assay lysis buffer,RIPA裂解液),冰上裂解30 min,12 000×g离心10 min取上清液。二辛可宁酸法(bicinchoninic acid assay,BCA法)测定蛋白浓度后,加入5×上样缓冲液煮沸10 min变性。取30 μg蛋白经10%十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(sodium dodecyl sulfate-polyacrylamide gel electrophoresis,SDS-PAGE)分离(浓缩胶80 V,分离胶120 V),湿转法(300 mA恒流,90 min)转至聚偏二氟乙烯膜(polyvinylidene fluoride membrane,PVDF膜)。用含吐温-20的Tris缓冲盐水(Tris-buffered saline with Tween-20,TBST)配制5%脱脂牛奶室温封闭1 h,加入一抗4 ℃孵育过夜(USP38、Ki-67、p53、PCNA、N-cadherin、vimentin兔多克隆抗体的稀释比例1∶3 000,RBM14兔多克隆抗体、β-actin兔单克隆抗体稀释比例1∶3 000),TBST洗膜3次后加入辣根过氧化物酶标记的山羊抗兔二抗(稀释比例1∶5 000),室温孵育1 h。TBST洗膜后以增强化学发光法(enhanced chemiluminescence,ECL)检测蛋白条带。
1.4 RNA提取及实时荧光定量PCR
采用Trizol法提取组织或细胞总RNA。加入三氯甲烷萃取后离心(12 000×g,15 min),取水相加入异丙醇沉淀,用体积分数75%的乙醇洗涤2次,干燥后溶于焦碳酸二乙酯水(diethyl pyrocarbonate water,DEPC水)。使用分光光度计检测RNA纯度,要求A260/A280比值在1.8~2.0之间。取1 μg总RNA,使用反转录试剂盒在42 ℃反应60 min,70 ℃灭活5 min,合成互补脱氧核糖核酸(complementary deoxyribonucleic acid,cDNA)。
实时荧光定量PCR(quantitative real-time PCR,qPCR)反应体系(20 μL):SYBR Green预混液(SYBR Green Master Mix)10 μL、上下游引物各0.5 μL(终浓度250 nmol/L)、cDNA模板2 μL(约100 ng)、无核糖核酸酶水补至20 μL。以β-actin为内参,采用SYBR Green法在qPCR仪上进行检测。反应条件:95 ℃预变性3 min;40个循环(95 ℃变性10 s,60 ℃退火/延伸30 s)。每个样品设置3个复孔,采用2-ΔΔCT法计算目的基因的相对表达量。引物序列为:USP38上游引物,5'-TGTGAGACCTGGTGCTCT TGCA-3';USP38下游引物,5'-GGCTGTACTTGAAG GCAGACCA-3';β-actin上游引物,5'-CACCATTGGC AATGAGCGGTTC-3';β-actin下游引物,5'-AGGTCT TTGCGGATGTCCACGT-3'。
1.5 稳定转染及瞬时转染
取对数生长期的HEK-293T细胞接种于10 cm培养皿,待细胞汇合度达60%~70%时进行转染。转染采用聚乙烯亚胺试剂,按PEI与质粒质量比3∶1将慢病毒包装质粒混合物加入无血清DMEM培养基中,室温孵育15 min后均匀滴加至细胞培养皿中。慢病毒包装质粒混合物包括:穿梭质粒10 μg、辅助包装质粒psPAX2 7.5 μg和pMD2.G 2.5 μg。穿梭质粒为靶向USP38的shRNA质粒pLKO.1-shUSP38,或阴性对照(shNC)质粒pLKO.1-shNC,或RBM14过表达质粒pLV3-RBM14。shNC序列为5'-TTCTCCGAACGTGT CACGT-3',shUSP38序列为5'-ACAAGATTCTTGTT AATAA-3'。转染6 h后更换为含10%胎牛血清的DMEM完全培养基,48 h和72 h后收集病毒上清液,0.45 μm滤膜过滤。病毒液与细胞培养基按1∶1体积感染对数生长期胃癌细胞AGS和HGC-27,24 h后换液,48 h后加入嘌呤霉素筛选1~2周。通过蛋白质印迹法(Western blotting)及qPCR验证感染效率,建立稳定敲低USP38或过表达RBM14的胃癌细胞株。
在稳定敲低USP38的AGS或HGC-27细胞中瞬时转染RBM14过表达质粒。细胞接种于6孔板,待汇合度达70%时,使用PEI将RBM14过表达质粒(pLV3-RBM14,2 μg/孔)转染细胞,同时转染空载体作为对照。6 h后更换为完全培养基,继续培养48 h。收集细胞用于后续功能实验。
1.6 细胞功能实验及回补实验
细胞功能实验中使用稳定敲低USP38的AGS及HGC-27细胞株(shUSP38组)和阴性对照细胞(shNC组)。功能回补(rescue)实验中,将RBM14过表达质粒pCDH-RBM14转染至shUSP38组细胞中。实验分为3组:shUSP38组、shNC+OE-RBM14组、和shUSP38+OE-RBM14组。所有细胞均经嘌呤霉素筛选,并通过qPCR和蛋白质印迹法验证表达效率。
CCK-8增殖实验将上述细胞以2×10³个/孔的密度接种于96孔板,分别于0、24、48、72 h加入CCK-8试剂,37 ℃孵育2 h后于450 nm测定吸光度值。克隆形成实验以1×10³个/孔的密度接种于6孔板,连续培养12 d,每5 d换液1次;终止后用4%多聚甲醛固定、0.1%结晶紫染色,计数含50个细胞以上的克隆数。EdU增殖实验采用10 μmol/L EdU标记细胞2 h,用Apollo 567染色,Hoechst 33342复染细胞核,在荧光显微镜下拍摄随机5个视野,ImageJ软件计算EdU阳性细胞比例。划痕实验待细胞汇合度达95%以上时,用200 μL无菌枪头划痕,经磷酸缓冲盐溶液(phosphate buffered saline,PBS)洗涤后加入无血清培养基,于0 h和24 h在倒置显微镜下拍照,用ImageJ软件测量划痕宽度并计算迁移率。所有实验独立重复3次。
1.7 蛋白稳定性检测实验
为检测USP38对下游靶蛋白RBM14稳定性的调控作用,分别采用CHX追踪实验和蛋白酶体抑制剂MG132处理实验。将对照组(shNC组)和USP38敲低组(shUSP38组)的AGS及HGC-27胃癌细胞接种于6孔板,待细胞汇合度达80%时进行以下处理。CHX实验中,加入50 μg/mL CHX以抑制新蛋白合成,分别于0、2、4、6 h收集细胞,用含蛋白酶抑制剂的RIPA裂解液提取总蛋白,通过蛋白质印迹法检测RBM14蛋白水平,以β-actin为内参,计算各时间点蛋白残留百分比,比较2组间RBM14降解速率及半衰期。MG132实验中,加入10 μmol/L MG132处理6 h以抑制蛋白酶体活性,同时设置二甲基亚砜(dimethyl sulfoxide,DMSO)处理组作为阴性对照;处理结束后收集细胞,提取总蛋白,蛋白质印迹法检测RBM14蛋白水平,并评估泛素化修饰变化。
1.8 数据库生物信息学分析
使用癌症基因组图谱(The Cancer Genome Atlas,TCGA)数据库胃腺癌(stomach adenocarcinoma,STAD)数据集分析USP38的表达特征及其对预后的评估价值,并依托R语言(v4.5.2)对原始数据进行校正、标准化处理及差异表达分析,共筛选出407例含有病理组织信息的患者。基因集富集分析(Gene Set Enrichment Analysis,GSEA)、基因本体论(Gene Ontology,GO)及京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes,KEGG)均通过clusterProfiler和enrichplot R软件包完成;人类基因注释使用R包org.Hs.eg.db;基因集通过msigdbr获取;差异表达分析使用limma包完成;可视化图形使用tidyverse、ggpubr和patchwork包绘制;相关性热图使用corrplot包绘制。使用Kaplan-Meier Plotter在线生存分析工具对基因表达综合数据库(Gene Expression Omnibus,GEO)中的胃癌患者进行Kaplan-Meier生存分析[19];以USP38表达量的中位数为临界值将患者划分为高、低表达2组,绘制856例患者总生存期的生存曲线,借助Log-rank检验评价组间总生存期差异的统计学意义。利用Pearson相关性分析考察USP38与增殖标志物、免疫检查点等关键分子的表达相关性。最后,以|R|>0.3且P<0.05为标准筛选与USP38表达相关的基因,分别进行GSEA、GO和KEGG分析,探索USP38相关基因参与胃癌调控的潜在分子通路。
1.9 统计学方法
使用GraphPad Prism 9.0、R 4.5.2软件处理数据。定量资料以x±s表示,2组间比较采用t检验,多组间比较采用单因素方差分析(One-way ANOVA)。生存分析采用log‑rank检验,结果以风险比(HR)展示。相关性分析采用Pearson相关分析,结果以相关系数(R)及其P值表示。对于TCGA数据库中458例含完整临床数据的胃癌患者,分析USP38表达水平与患者临床病理特征的关联性,定量资料组间比较采用Wilcoxon秩和检验,定性资料组间比较采用χ²检验。GSEA、GO及KEGG富集分析采用调整后P值(adjusted P value,Padj)进行多重假设检验校正,以控制假阳性率。P<0.05表示差异具有统计学意义。
2 结果
2.1 USP38在胃癌中高表达且与晚期病理分期相关
通过TCGA数据库分析发现,胃癌组织中的USP38 mRNA水平显著高于正常组织(P<0.001,图1A)。进一步在50对胃癌临床样本中验证,qPCR和蛋白质印迹法结果显示USP38在癌组织中的表达量显著高于配对癌旁组织(P<0.001,图1B、C)。细胞层面,与人正常胃黏膜上皮细胞系GES-1相比,USP38在多种胃癌细胞系中均呈高表达,其中以AGS细胞的上调最为显著(P=0.009,图1D)。此外,采用Kaplan-Meier法对GEO数据库的856例胃癌患者进行生存分析,结果显示USP38高表达组患者的总生存期显著短于低表达组(Log-rank P<0.001,HR=1.36,图1E),提示USP38高表达与胃癌患者不良预后密切相关。上述结果表明,USP38在胃癌组织中表达上调,可能作为促癌因子参与疾病进展。
图1
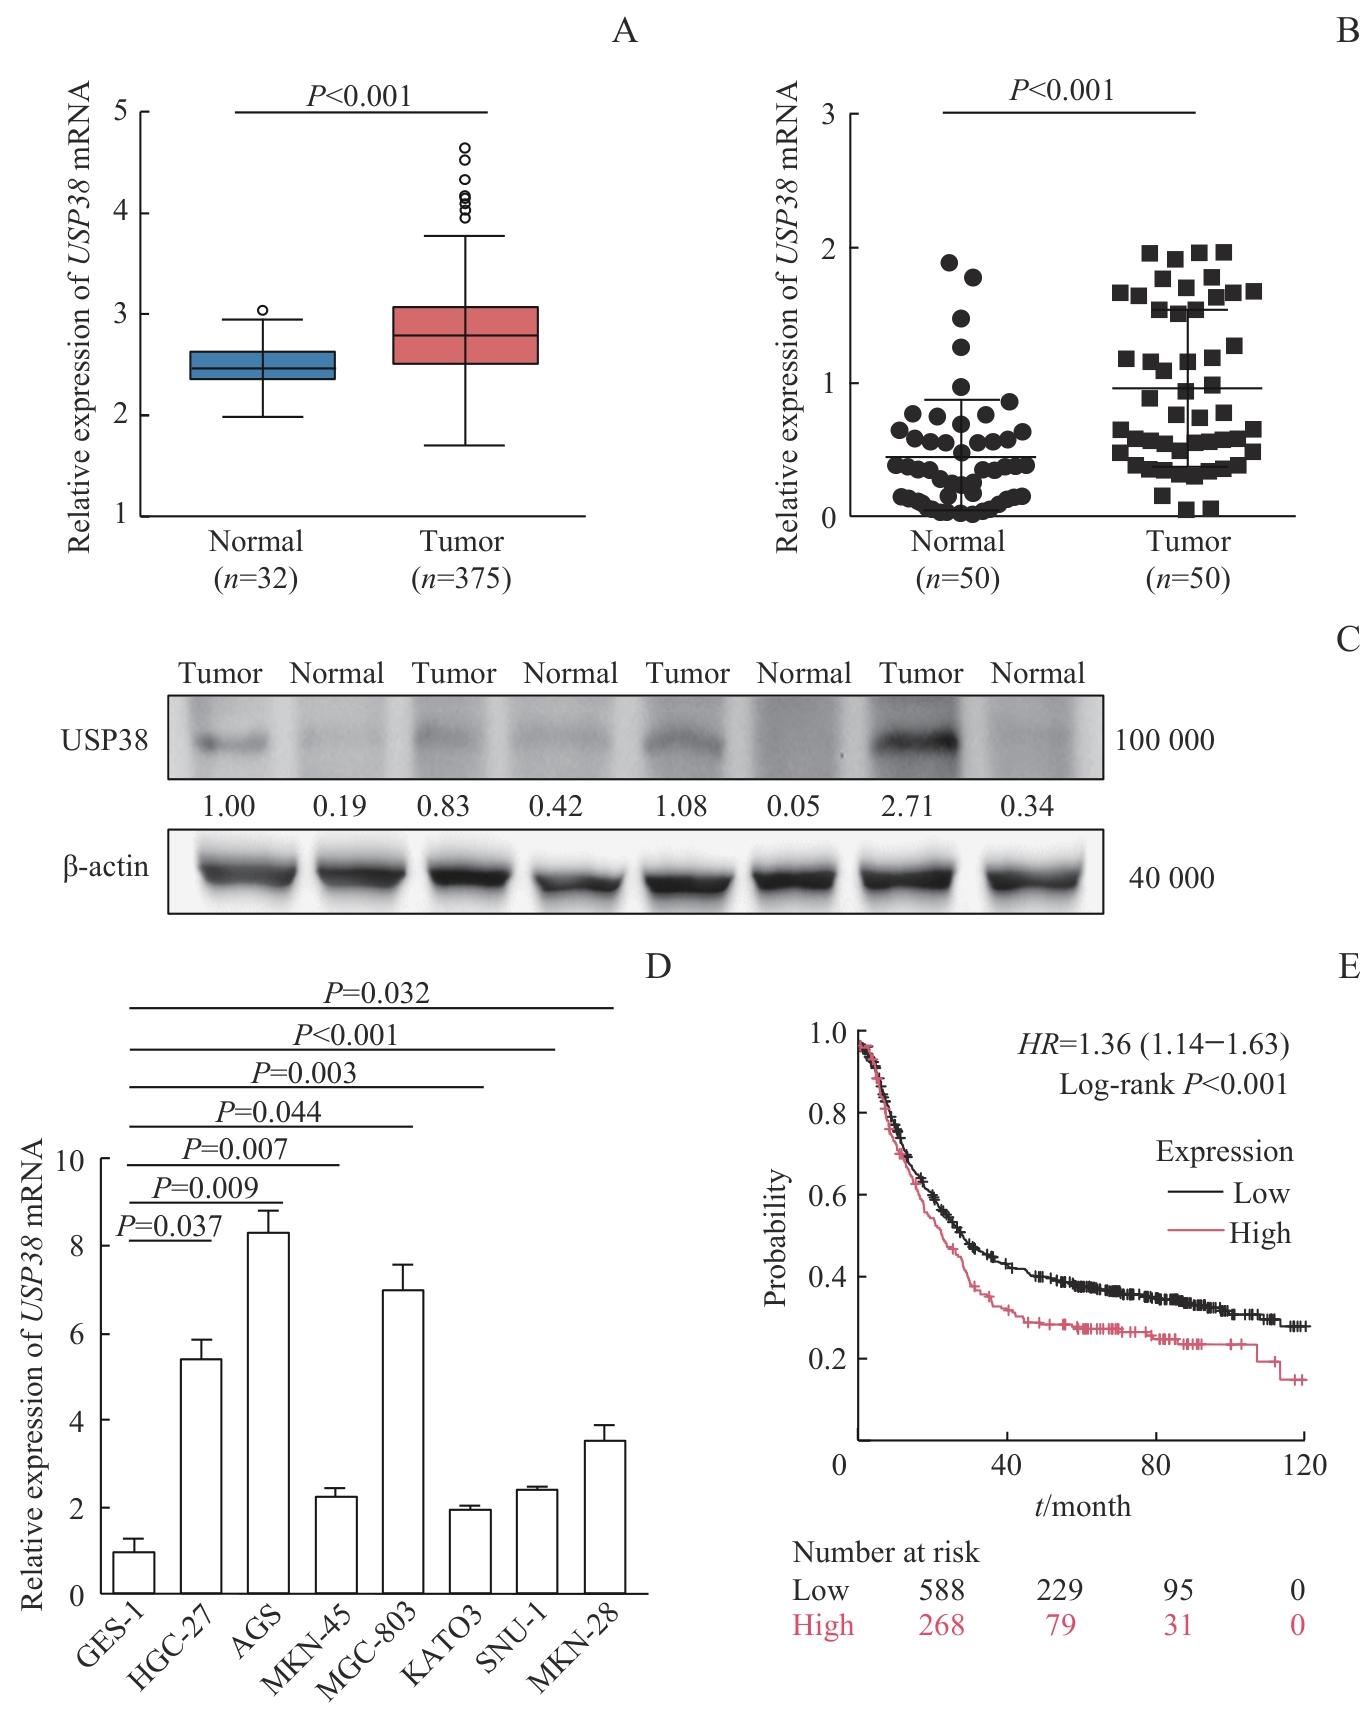
图1
USP38在胃癌组织及细胞中的表达模式及其对预后的影响
Note: A. Expression of USP38 mRNA
Fig 1
Expression of USP38 in gastric cancer tissues and cells and its impact on prognosis
随后纳入TCGA数据库中含完整临床信息的458例胃癌患者,以USP38表达水平中位数为界分为高、低表达组,分析USP38表达水平高低与临床病理参数的相关性。结果(表1)表明,USP38的表达与患者性别(P=0.005)及病理分期(P=0.017)显著相关。具体而言,高表达组中女性患者比例显著高于低表达组,而年龄分布差异则未见统计学意义。在临床特征方面,高表达组中Ⅲ期(45.1% vs 33.8%)和Ⅳ期(11.8% vs 9.7%)患者的比例均高于低表达组,而低表达组中Ⅱ期患者占比高于高表达组(40.7% vs 26.5%)。综上所述,USP38高表达与胃癌晚期分期密切相关,提示其可能参与肿瘤进展。
表1 USP38 表达水平与胃癌临床病理特征相关性分析
Tab 1
| Variable | Overall (n =458) | Low (n =229) | High (n =229) | P value |
|---|---|---|---|---|
| Age/year | 67.5 (58.0, 74.0) | 67.0 (58.0, 72.0) | 68.0 (60.0, 75.0) | 0.051 |
| Gender/n(%) | 0.005 | |||
| Female | 167 (36.5) | 69 (30.1) | 98 (42.8) | |
| Male | 291 (63.5) | 160 (69.9) | 131 (57.2) | |
| Histologic grade/n(%) | 0.600 | |||
| G1 | 13 (2.9) | 6 (2.7) | 7 (3.1) | |
| G2 | 168 (37.8) | 88 (40.0) | 80 (35.6) | |
| G3 | 264 (59.3) | 126 (57.3) | 138 (61.3) | |
| Pathologic stage/n(%) | 0.017 | |||
| Stage Ⅰ | 68 (16.2) | 34 (15.7) | 34 (16.7) | |
| Stage Ⅱ | 142 (33.8) | 88 (40.7) | 54 (26.5) | |
| Stage Ⅲ | 165 (39.3) | 73 (33.8) | 92 (45.1) | |
| Stage Ⅳ | 45 (10.7) | 21 (9.7) | 24 (11.8) | |
| T stage/n(%) | 0.066 | |||
| T1 | 25 (5.7) | 12 (5.2) | 13 (6.1) | |
| T2 | 104 (23.5) | 49 (21.4) | 55 (25.8) | |
| T3 | 201 (45.5) | 118 (51.5) | 83 (39.0) | |
| T4 | 112 (25.3) | 50 (21.8) | 62 (29.1) | |
| N stage/n(%) | 0.200 | |||
| N0 | 141 (32.9) | 81 (37.0) | 60 (28.6) | |
| N1 | 120 (28.0) | 61 (27.9) | 59 (28.1) | |
| N2 | 88 (20.5) | 38 (17.4) | 50 (23.8) | |
| N3 | 80 (18.6) | 39 (17.8) | 41 (19.5) | |
| M stage/n(%) | 0.800 | |||
| M0 | 402 (93.3) | 200 (93.0) | 202 (93.5) | |
| M1 | 29 (6.7) | 15 (7.0) | 14 (6.5) |
2.2 USP38促进胃癌细胞增殖与迁移
为探究USP38对胃癌细胞生物学行为的影响,在AGS及HGC-27细胞中转染shUSP38构建USP38稳定敲低模型,同时转染shNC作为阴性对照。qPCR结果显示,相较于shNC组,shUSP38组USP38 mRNA表达水平显著降低(P<0.001,图2A)。CCK-8实验显示,敲低USP38后胃癌细胞的增殖速率显著下降(P<0.05,图2B)。平板克隆形成实验表明,shUSP38组细胞形成的克隆数目减少、体积缩小(P<0.05,图2C),提示USP38参与维持胃癌细胞的群体增殖能力。与shNC组相比,shUSP38组细胞中EdU阳性细胞比例显著降低(P<0.05,图2D),同样验证了敲低USP38可抑制胃癌细胞增殖。划痕愈合实验中,shUSP38组细胞的愈合率在24 h后显著低于对照组(P<0.05,图2E),表明敲低USP38可抑制胃癌细胞的迁移。因此,USP38表达的下调可有效抑制胃癌细胞的增殖与迁移能力,提示其在胃癌恶性进展中发挥促进作用。
图2
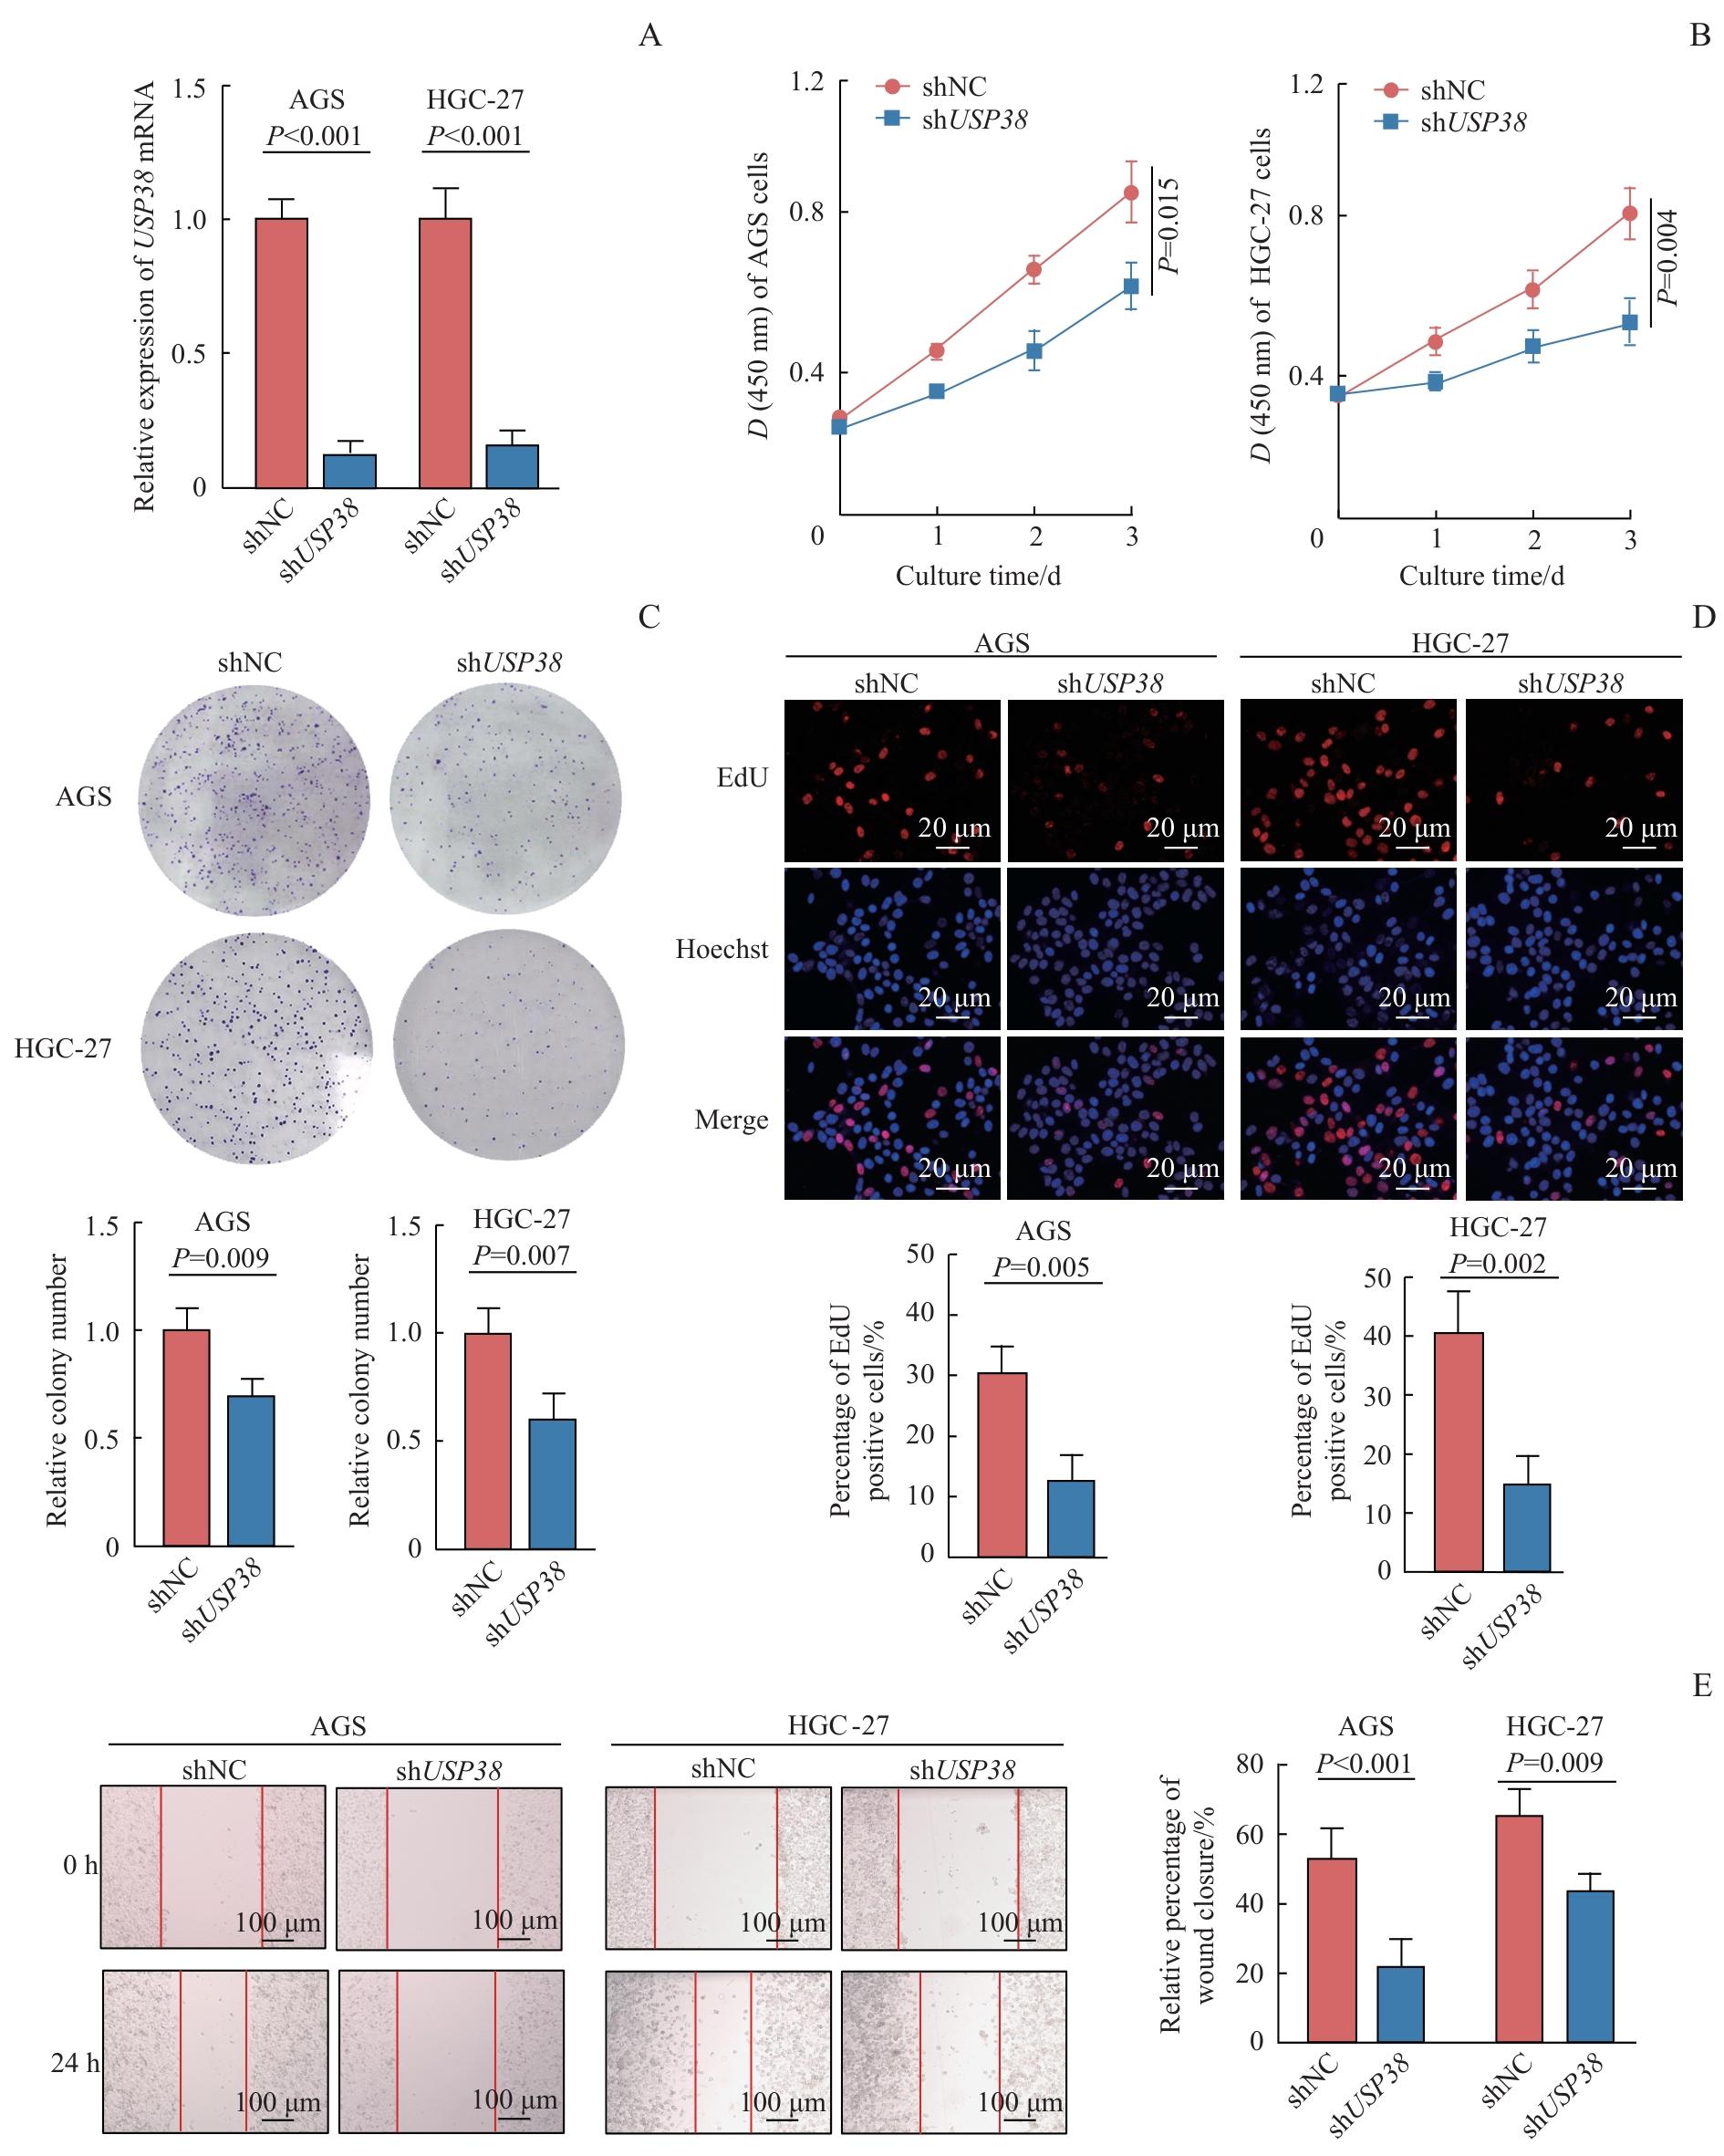
图2
USP38促进胃癌细胞增殖和迁移的作用
Note: A. Validation of USP38 knockdown efficiency in AGS and HGC-27 gastric cancer cells by qPCR. B‒D. CCK-8 assay (B), colony formation assay (C), and EdU assay (D) assessing the effect of USP38 knockdown on the proliferation of AGS and HGC-27 gastric cancer cells. E. Wound healing assay examining the effect of USP38 knockdown on the migration of AGS and HGC-27 gastric cancer cells. Data are presented as mean±SD (unpaired t‑test, shUSP38vs shNC).
Fig 2
Promotive effects of USP38 on proliferation and migration of gastric cancer cells
2.3 USP38通过调控细胞周期、炎症信号及代谢重编程驱动胃癌恶性进展
为进一步探究USP38调控胃癌进展的分子机制,通过转录组相关性分析筛选与USP38表达高度相关的基因集。结果(图3)显示,USP38表达水平与SWI/SNF相关基质肌动蛋白依赖性染色质重塑因子5(SWI/SNF related,matrix associated,actin dependent regulator of chromatin,subfamily a,member 5,SMARCA5)(R=0.76,P<0.001)、跨膜蛋白184C(transmembrane protein 184C,TMEM184C)(R=0.74,P<0.001)及OTU结构域去泛素化酶4(OTU domain containing 4,OTUD4)(R=0.69,P<0.001)等基因的表达水平呈强正相关。SMARCA5作为染色质重塑复合物的关键亚基,可参与染色体分离与基因组稳定性,与GO富集分析中染色体分离及纺锤体通路的上调相吻合(图4A、B),提示USP38可能通过协同此类因子确保胃癌细胞的高速有丝分裂进程。此外,USP38表达水平与线粒体编码基因表达水平呈现普遍负相关,其中与氧化磷酸化核心亚基线粒体编码细胞色素c氧化酶Ⅲ(mitochondrially encoded cytochrome c oxidase Ⅲ,MT-CO3)、线粒体编码ATP合酶6(mitochondrially encoded ATP synthase 6,MT-ATP6)及线粒体编码NADH脱氢酶3(mitochondrially encoded NADH dehydrogenase 3,MT-ND3)的表达水平相关性尤为显著(R值-0.43‒-0.39,P<0.001)。这一负向关联提示USP38高表达可能伴随细胞能量代谢从氧化磷酸化向糖酵解模式转变。
图3
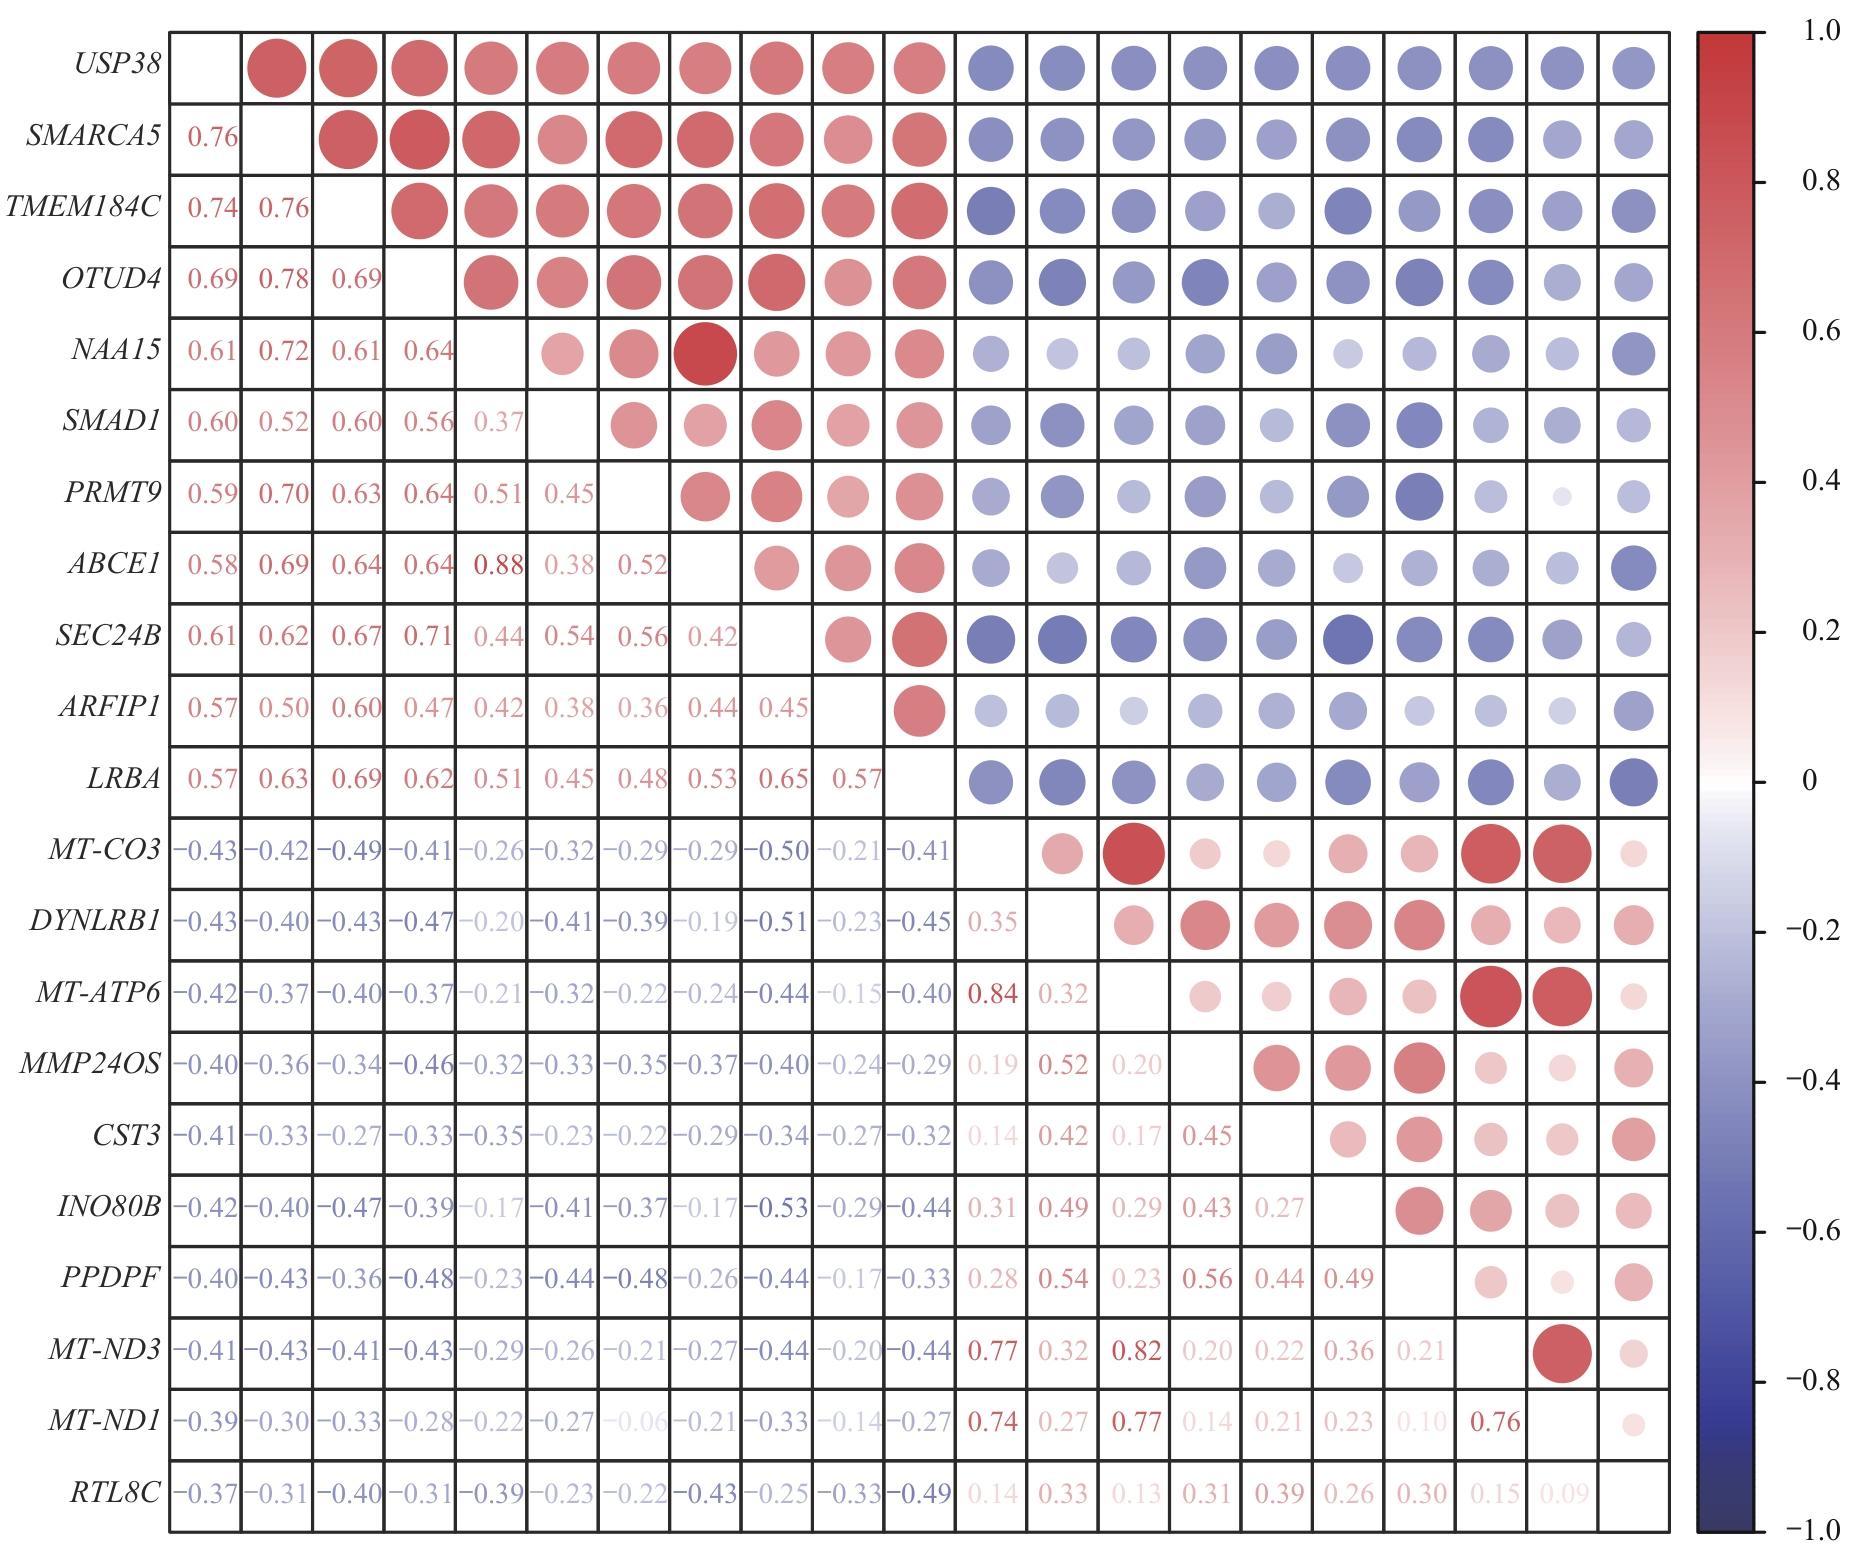
图3
与 USP38 表达水平相关的基因热图
Note: Color represents the Pearson correlation coefficient, with red indicating positive correlation and blue indicating negative correlation. SMARCA5—SWI/SNF-related, matrix-associated, actin-dependent regulator of chromatin, subfamily A, member 5; TMEM184C—transmembrane protein 184C; OTUD4—OTU domain containing 4; NAA15—N-ɑ-acetyltransferase 15 NatA auxiliary subunit; SMAD1—SMAD family member 1; PRMT9—protein arginine methyltransferase 9; ABCE1—ATP-binding cassette subfamily E member 1; SEC24B—SEC24 homolog B COP Ⅱ coat complex component; DYNLRB1—dynein light chain roadblock-type 1; MMP24OS—MMP24 opposite strand; CST3—cystatin C; INO80B—INO80 complex subunit B; PPDPF—pancreatic progenitor cell differentiation and proliferation factor; RTL8C—retrotransposon Gag-like 8C; ARFIP1—ADP-ribosylation factor interacting protein 1; LRBA—lipopolysaccharide responsive beige-like anchor protein.
Fig 3
Heatmap of genes correlated with USP38 expression
图4
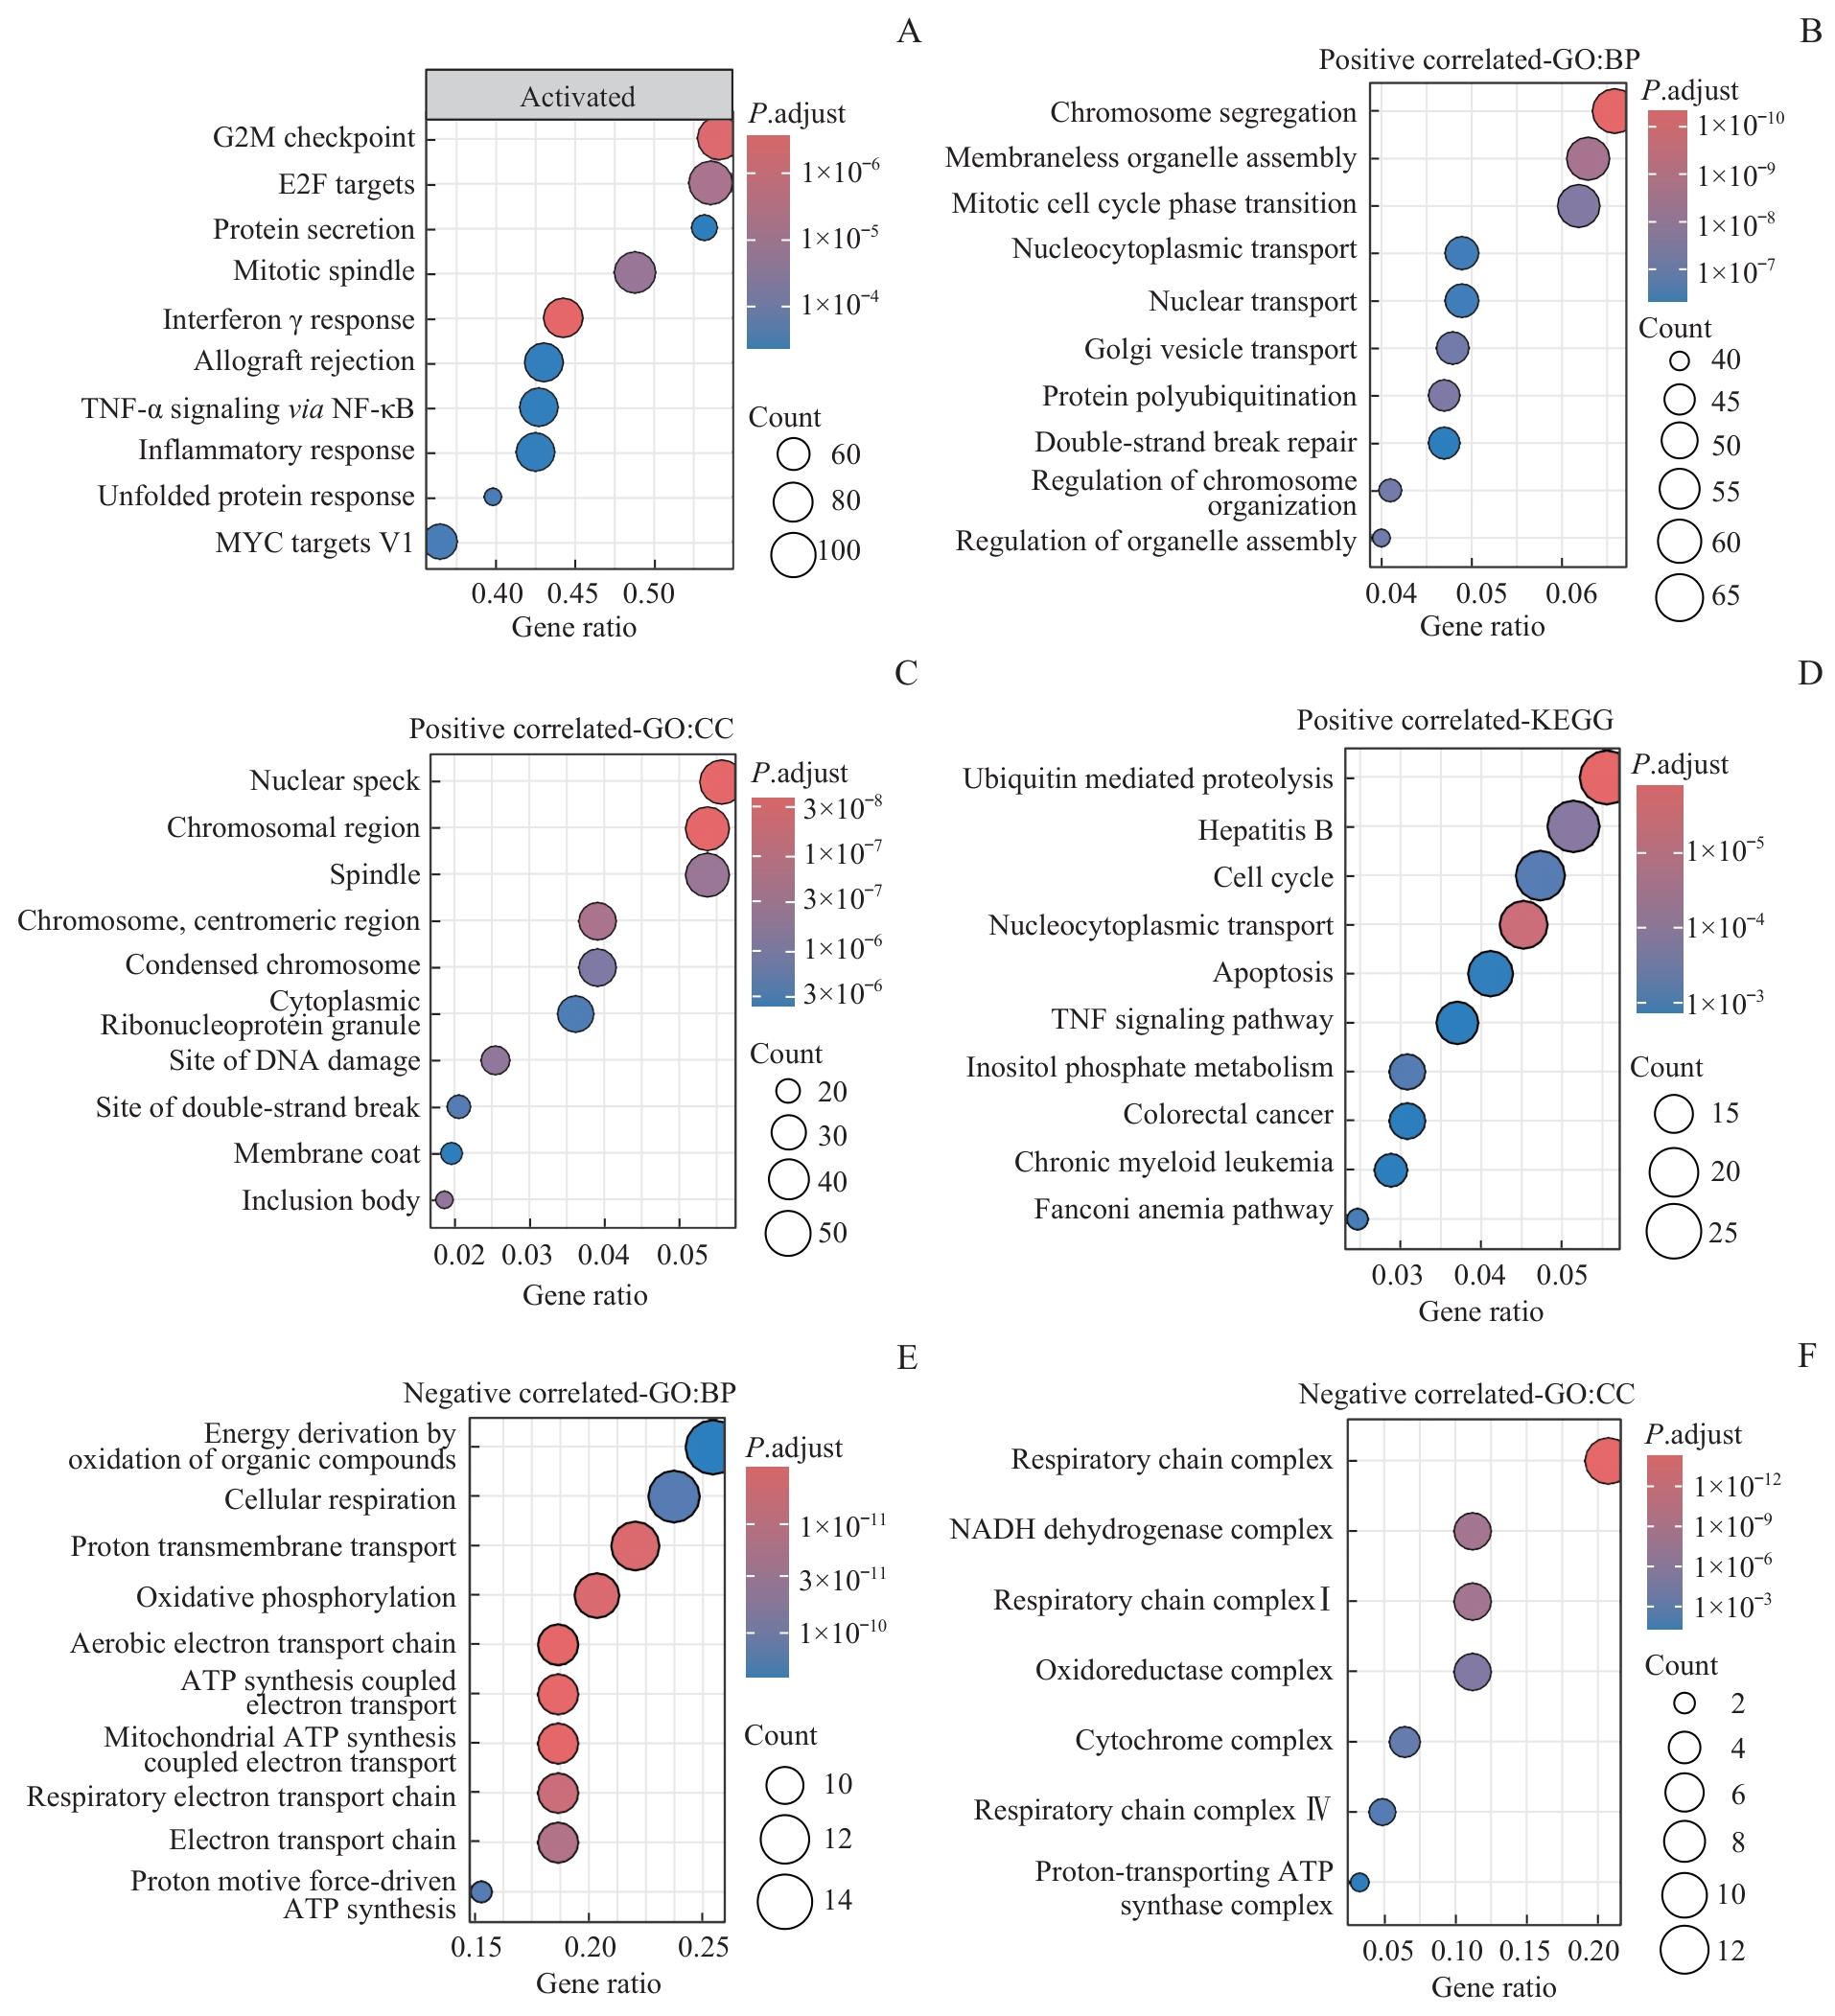
图4
USP38 相关基因在胃癌中的通路富集分析
Note: A. GSEA bubble plot (TCGA-STAD) showing the top 10 hallmark pathways activated in the USP38-high expression group. B‒D. Enrichment analyses of genes positively correlated with USP38: GO biological process (B), GO cellular component (C), and KEGG pathway (D). E/F. Enrichment analyses of genes negatively correlated with USP38: GO biological process (E), and GO cellular component (F).
Fig 4
Pathway enrichment analysis of USP38-related genes in gastric cancer
随后,对TCGA数据库中USP38高、低表达组的转录组数据进行GSEA分析。结果(图4A)显示,USP38高表达组显著富集于细胞周期调控与免疫应答相关通路。其中,G2/M检查点通路富集(Padj<0.001),同时早期2因子(early 2 factor,E2F)靶基因信号也显著上调(Padj<0.001)。尽管G2/M检查点的激活理论上会阻碍细胞周期进程,但E2F的上调可能促进S期向G2/M期的转换,两者的综合作用在胃癌中尚不清楚。然而,USP38高表达整体上表现为促增殖特征,提示USP38可能通过多种机制促进肿瘤进展。干扰素γ响应及核因子κB(nuclear factor κB,NF-κB)介导的肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)信号通路的显著激活(Padj<0.001),表明USP38在胃癌免疫微环境重塑及炎性信号转导中也具有潜在作用。
在基因功能注释层面,这一预测得到进一步印证。对USP38表达显著相关(|R|>0.3,P<0.05)的基因开展GO富集分析,结果显示正相关基因主要参与染色体分离、无膜细胞器组装及有丝分裂细胞周期转变等过程(均Padj<0.001,图4B)。细胞组分分析也证实这些基因表达的产物主要定位于核斑点、染色体区域及纺锤体(均Padj<0.001,图4C)。核斑点是RNA剪接的核心场所,提示USP38的下游底物可能与定位于核斑点的RNA结合蛋白有关。同时,着丝粒区域与DNA损伤位点的富集进一步提示USP38可能参与维持基因组稳定性及调控有丝分裂。KEGG通路分析表明,这些基因在泛素介导的蛋白质水解通路中高度富集,印证了USP38的去泛素化酶功能(均Padj<0.001,图4D)。此外,这些基因还显著富集于细胞周期、核质转运、凋亡、TNF信号转导等通路,同时与乙型肝炎、结直肠癌、慢性髓细胞性白血病等多种疾病相关。
另一方面,与USP38表达显著负相关的基因则高度富集于能量代谢相关通路(均Padj<0.001,图4E、F),涉及有机化合物氧化、氧化磷酸化及线粒体ATP合成等核心过程。
为验证上述发现与肿瘤恶性行为的相关性,通过Pearson相关性分析探讨USP38表达水平与肿瘤相关标志物的表达的关系。结果(图5A)显示,USP38表达水平与增殖标志物MKI67(R=0.32,P<0.001)、免疫检查点标志物CD274(即程序性死亡配体1,programmed death-ligand 1,PD-L1)(R=0.33,P<0.001)呈显著正相关,与上皮标志物钙黏蛋白1(cadherin 1,CDH1,即E-钙黏蛋白,E-cadherin)亦呈显著正相关(R=0.16,P=0.002),但与Erb-B2受体酪氨酸激酶2(erb-b2 receptor tyrosine kinase 2,ERBB2,即人表皮生长因子受体2,human epidermal growth factor receptor 2,HER2)无显著相关性(R=0.05,P=0.320)。上述结果表明USP38可能参与调控胃癌细胞增殖与肿瘤免疫逃逸,且该调控作用独立于HER2信号通路。
图5
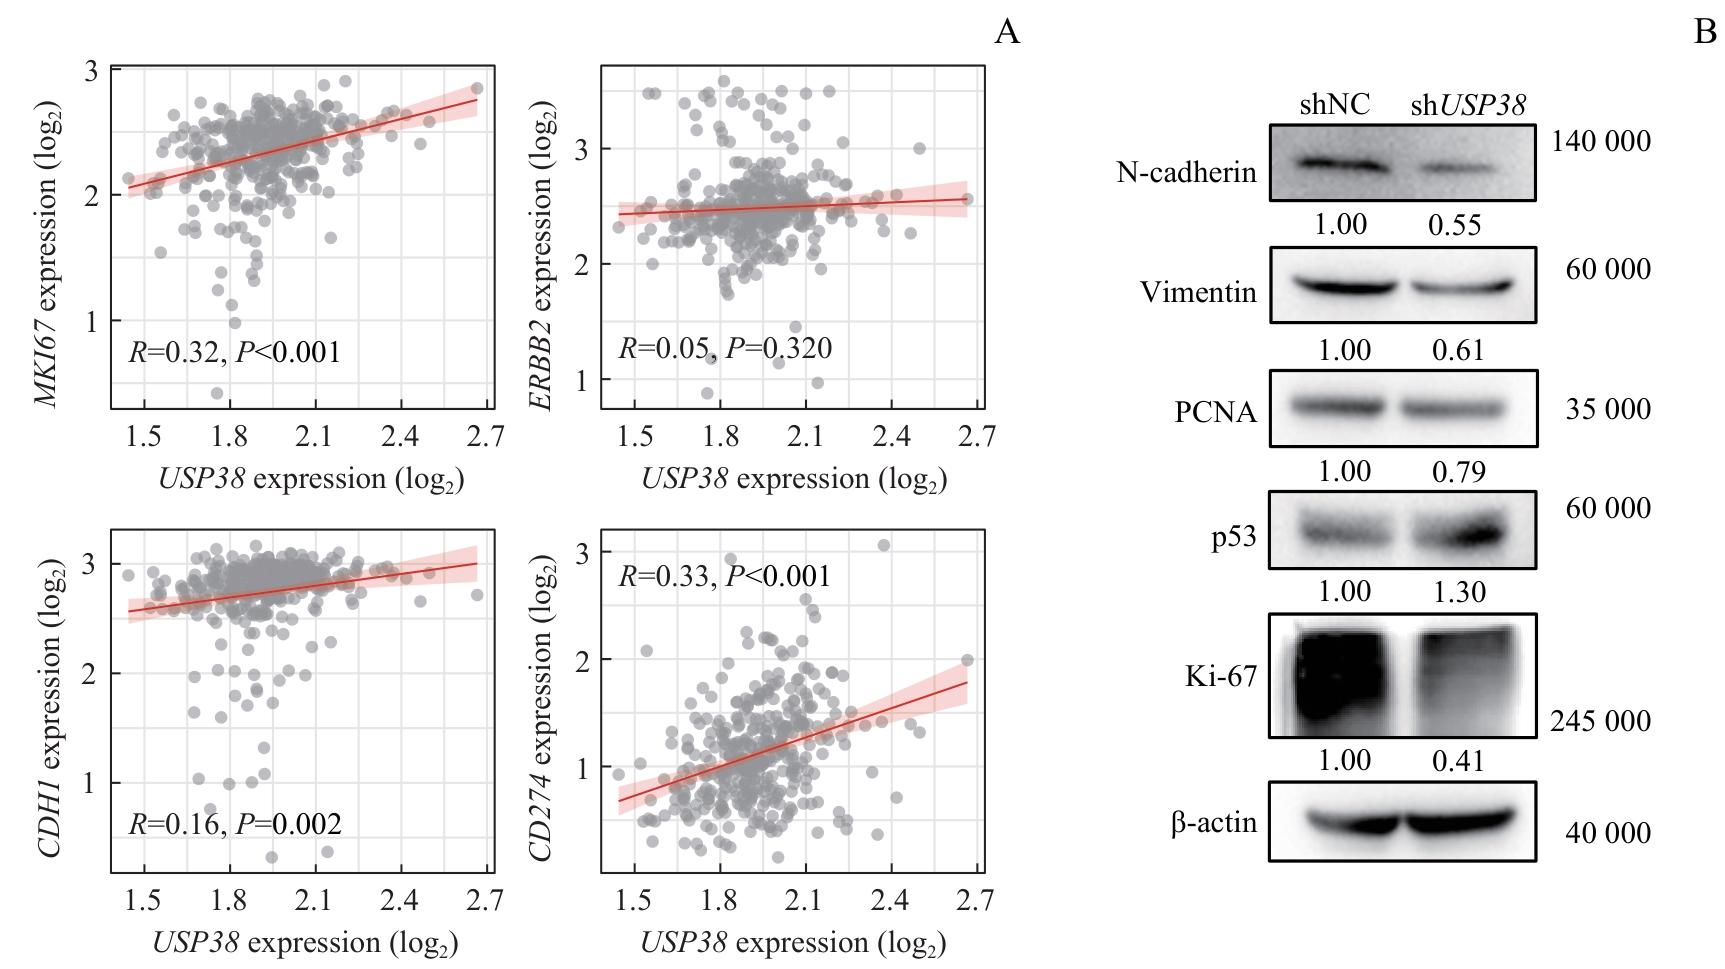
图5
USP38相关标志物在胃癌中的表达分析
Note: A. Correlation of USP38 with gastric cancer biomarkers MKI67, ERBB2, CDH1, and CD274 (95% confidence intervals shaded). B. Western blotting analysis of USP38 knockdown effects on AGS cell proliferation and tumor-associated protein expression. The numbers indicate relative protein expression levels.
Fig 5
Expression analysis of USP38-associated biomarkers in gastric cancer
进一步利用蛋白质印迹法检测敲低USP38对胃癌细胞关键信号蛋白表达的影响。结果(图5B)显示,敲低USP38能够上调抑癌蛋白p53的表达,下调增殖标志物PCNA与Ki-67的表达,同时降低上皮-间充质转化(epithelial-mesenchymal transition,EMT)间质标志物N-cadherin与vimentin的表达。这些结果侧面验证了生物信息学预测的E2F/G2/M驱动增殖效应,推测USP38可能通过维持特定底物的稳定性,抑制了p53信号通路并促进了细胞周期进展与EMT。综上,USP38不仅是判断胃癌预后的潜在分子指标,还可能通过协同调控多条肿瘤相关通路参与胃癌进展,有望成为胃癌临床干预的关键靶点。
2.4 USP38通过稳定RBM14蛋白促进胃癌进展
为探索USP38调控胃癌进展的下游靶点,首先对TCGA-STAD数据库进行表达相关性分析,筛选与USP38表达正相关的基因。其中,RBM14不仅与USP38的表达呈正相关(R=0.22,P<0.001,图6A),而且在胃癌组织中较正常组织显著高表达(P<0.001,图6B),同时高表达RBM14的患者总生存期显著缩短(HR=1.57,Log-rank P<0.001,图6C)。RBM14是一种广泛参与转录辅助激活及RNA剪接调控的核蛋白,在核斑点组成及DNA损伤修复等过程中发挥重要作用,已被报道在多种肿瘤中具有促癌功能[20]。GO/KEGG富集分析显示,USP38相关基因显著富集于RNA剪接、mRNA加工等生物学过程,这与RBM14作为RNA结合蛋白的功能相吻合。二者在核斑点及DNA损伤位点等细胞组分的富集高度一致,提示两者可能在核内功能复合体中协同发挥作用。已有质谱研究[12]提示RBM14是USP38的潜在结合蛋白,据此推测其可能是USP38的关键下游靶点。基于上述证据,选择RBM14作为USP38调控胃癌恶性表型的候选分子进行后续功能验证。
图6
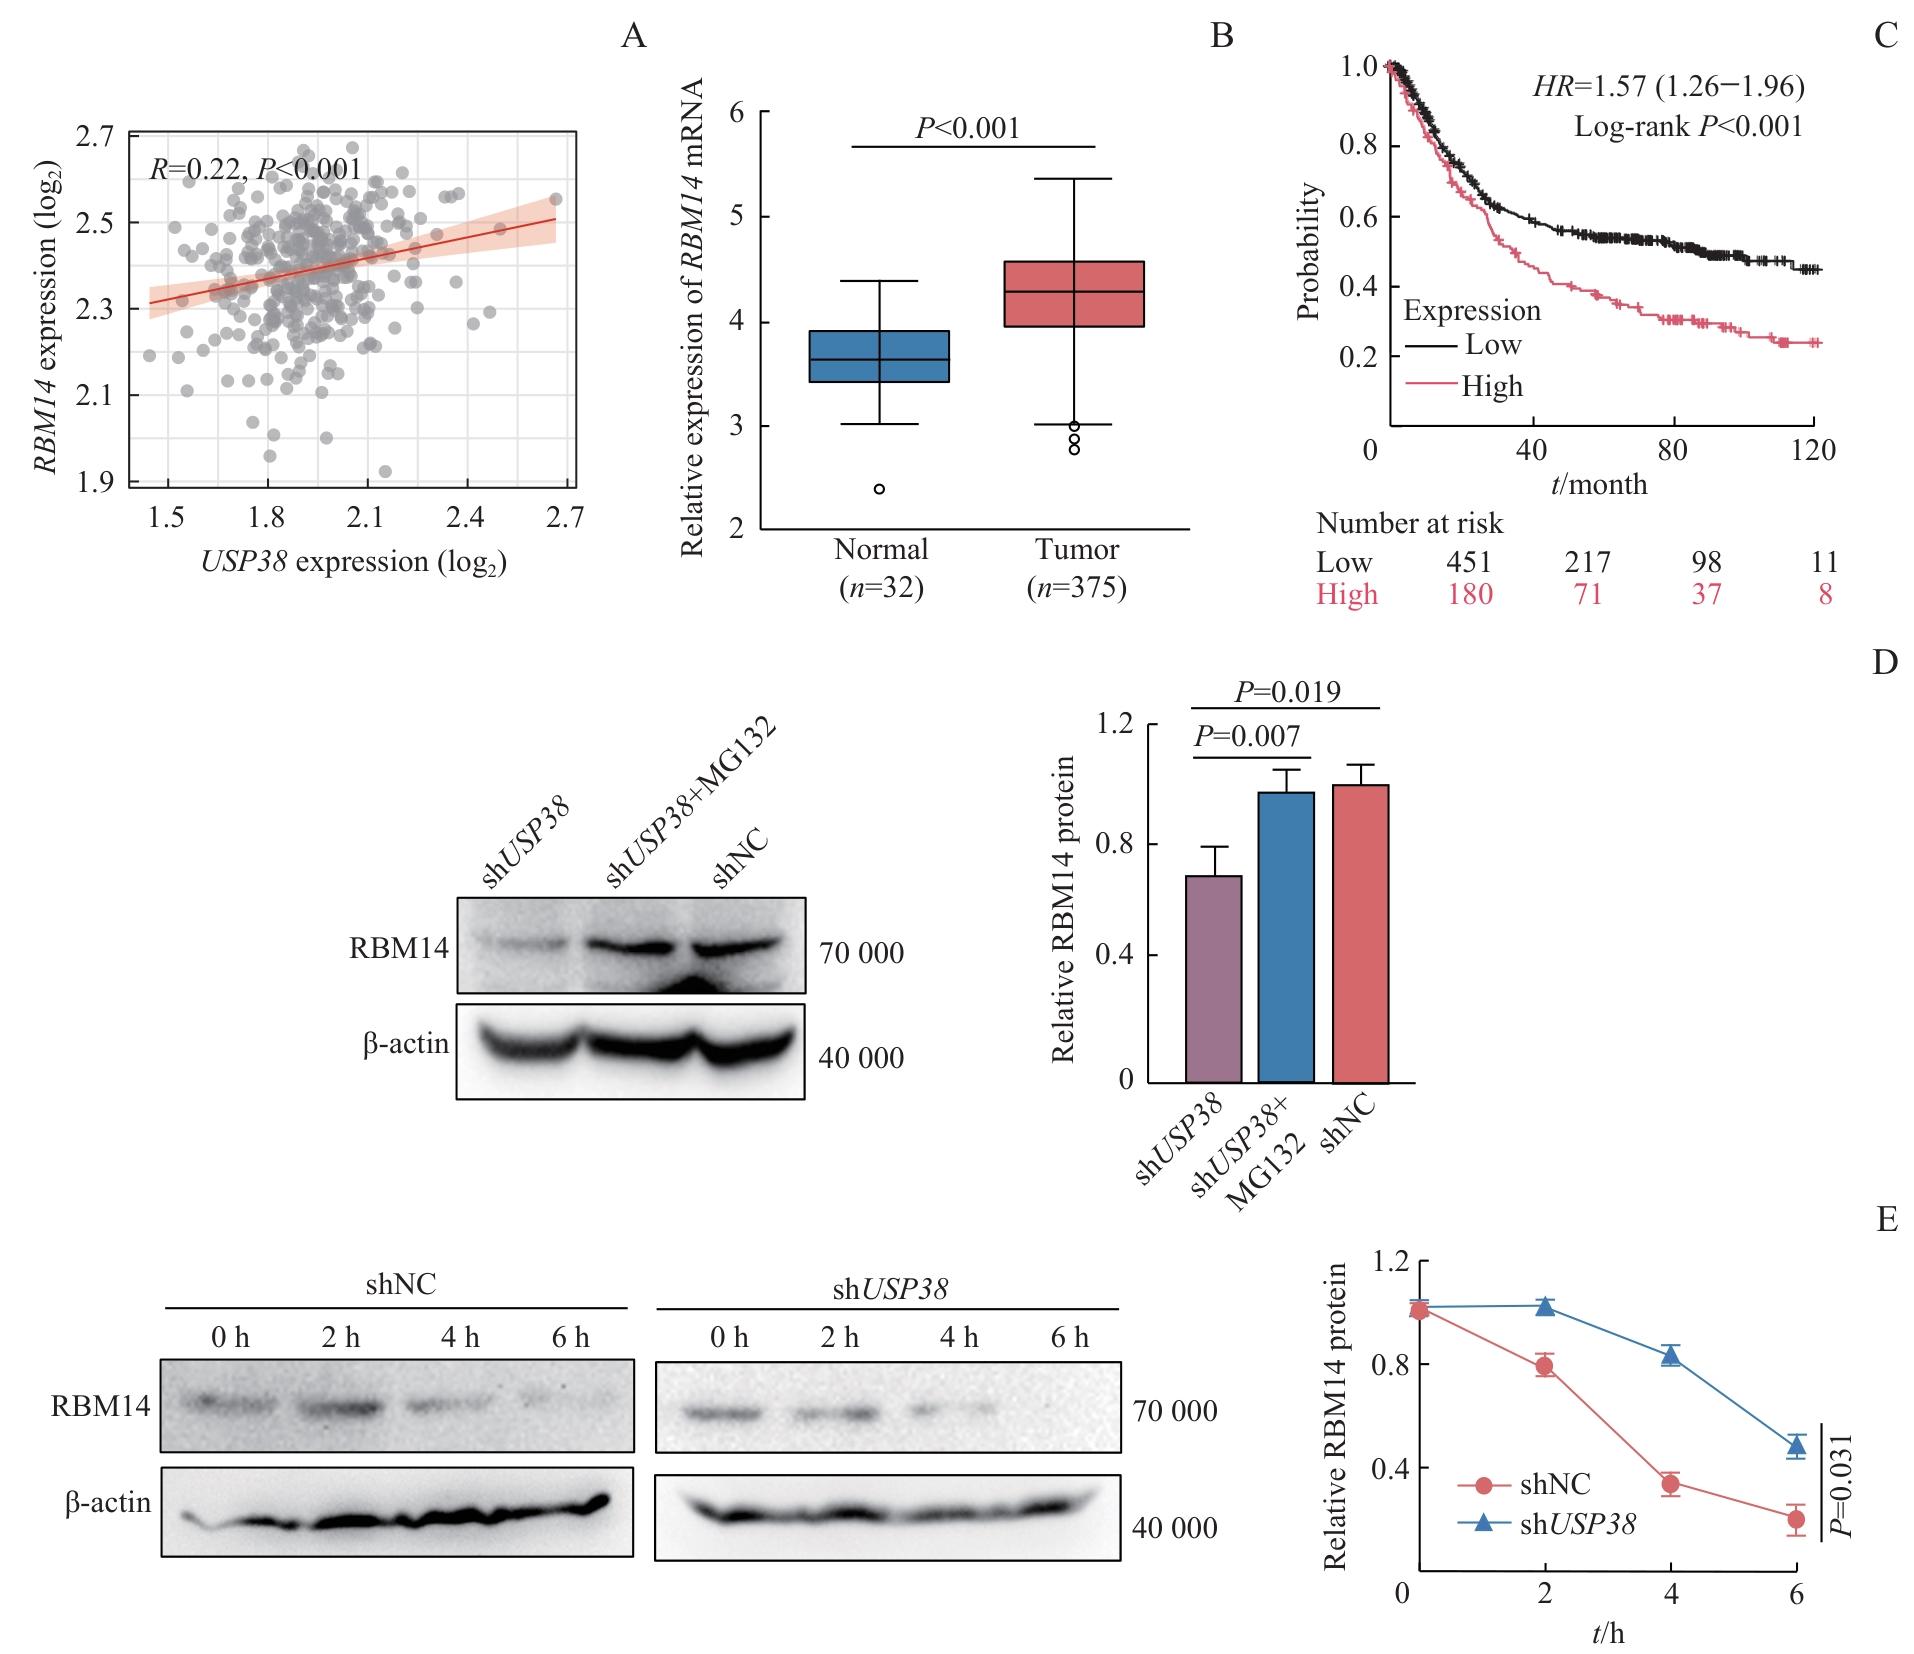
图6
USP38对RBM14蛋白的稳定作用
Note: A. Correlation analysis showing a positive association between USP38 and RBM14 mRNA expression in the TCGA-STAD database. B. RBM14 expression in gastric cancer tissues (n=375) and normal tissues (n=32) in TCGA database. C. Kaplan-Meier survival curves associating high RBM14 expression with poor prognosis in gastric cancer patients (n=631) in GEO database. D. Western blotting analysis of RBM14 protein levels following USP38 knockdown with or without MG132 treatment. Comparison of RBM14 protein levels: shUSP38vs shNC and shUSP38vs shUSP38+MG132. E. CHX chase assay showing accelerated RBM14 protein degradation upon USP38 knockdown (shUSP38vs shNC). Data are presented as mean±SD.
Fig 6
Stabilizing effect of USP38 on RBM14 protein
图7
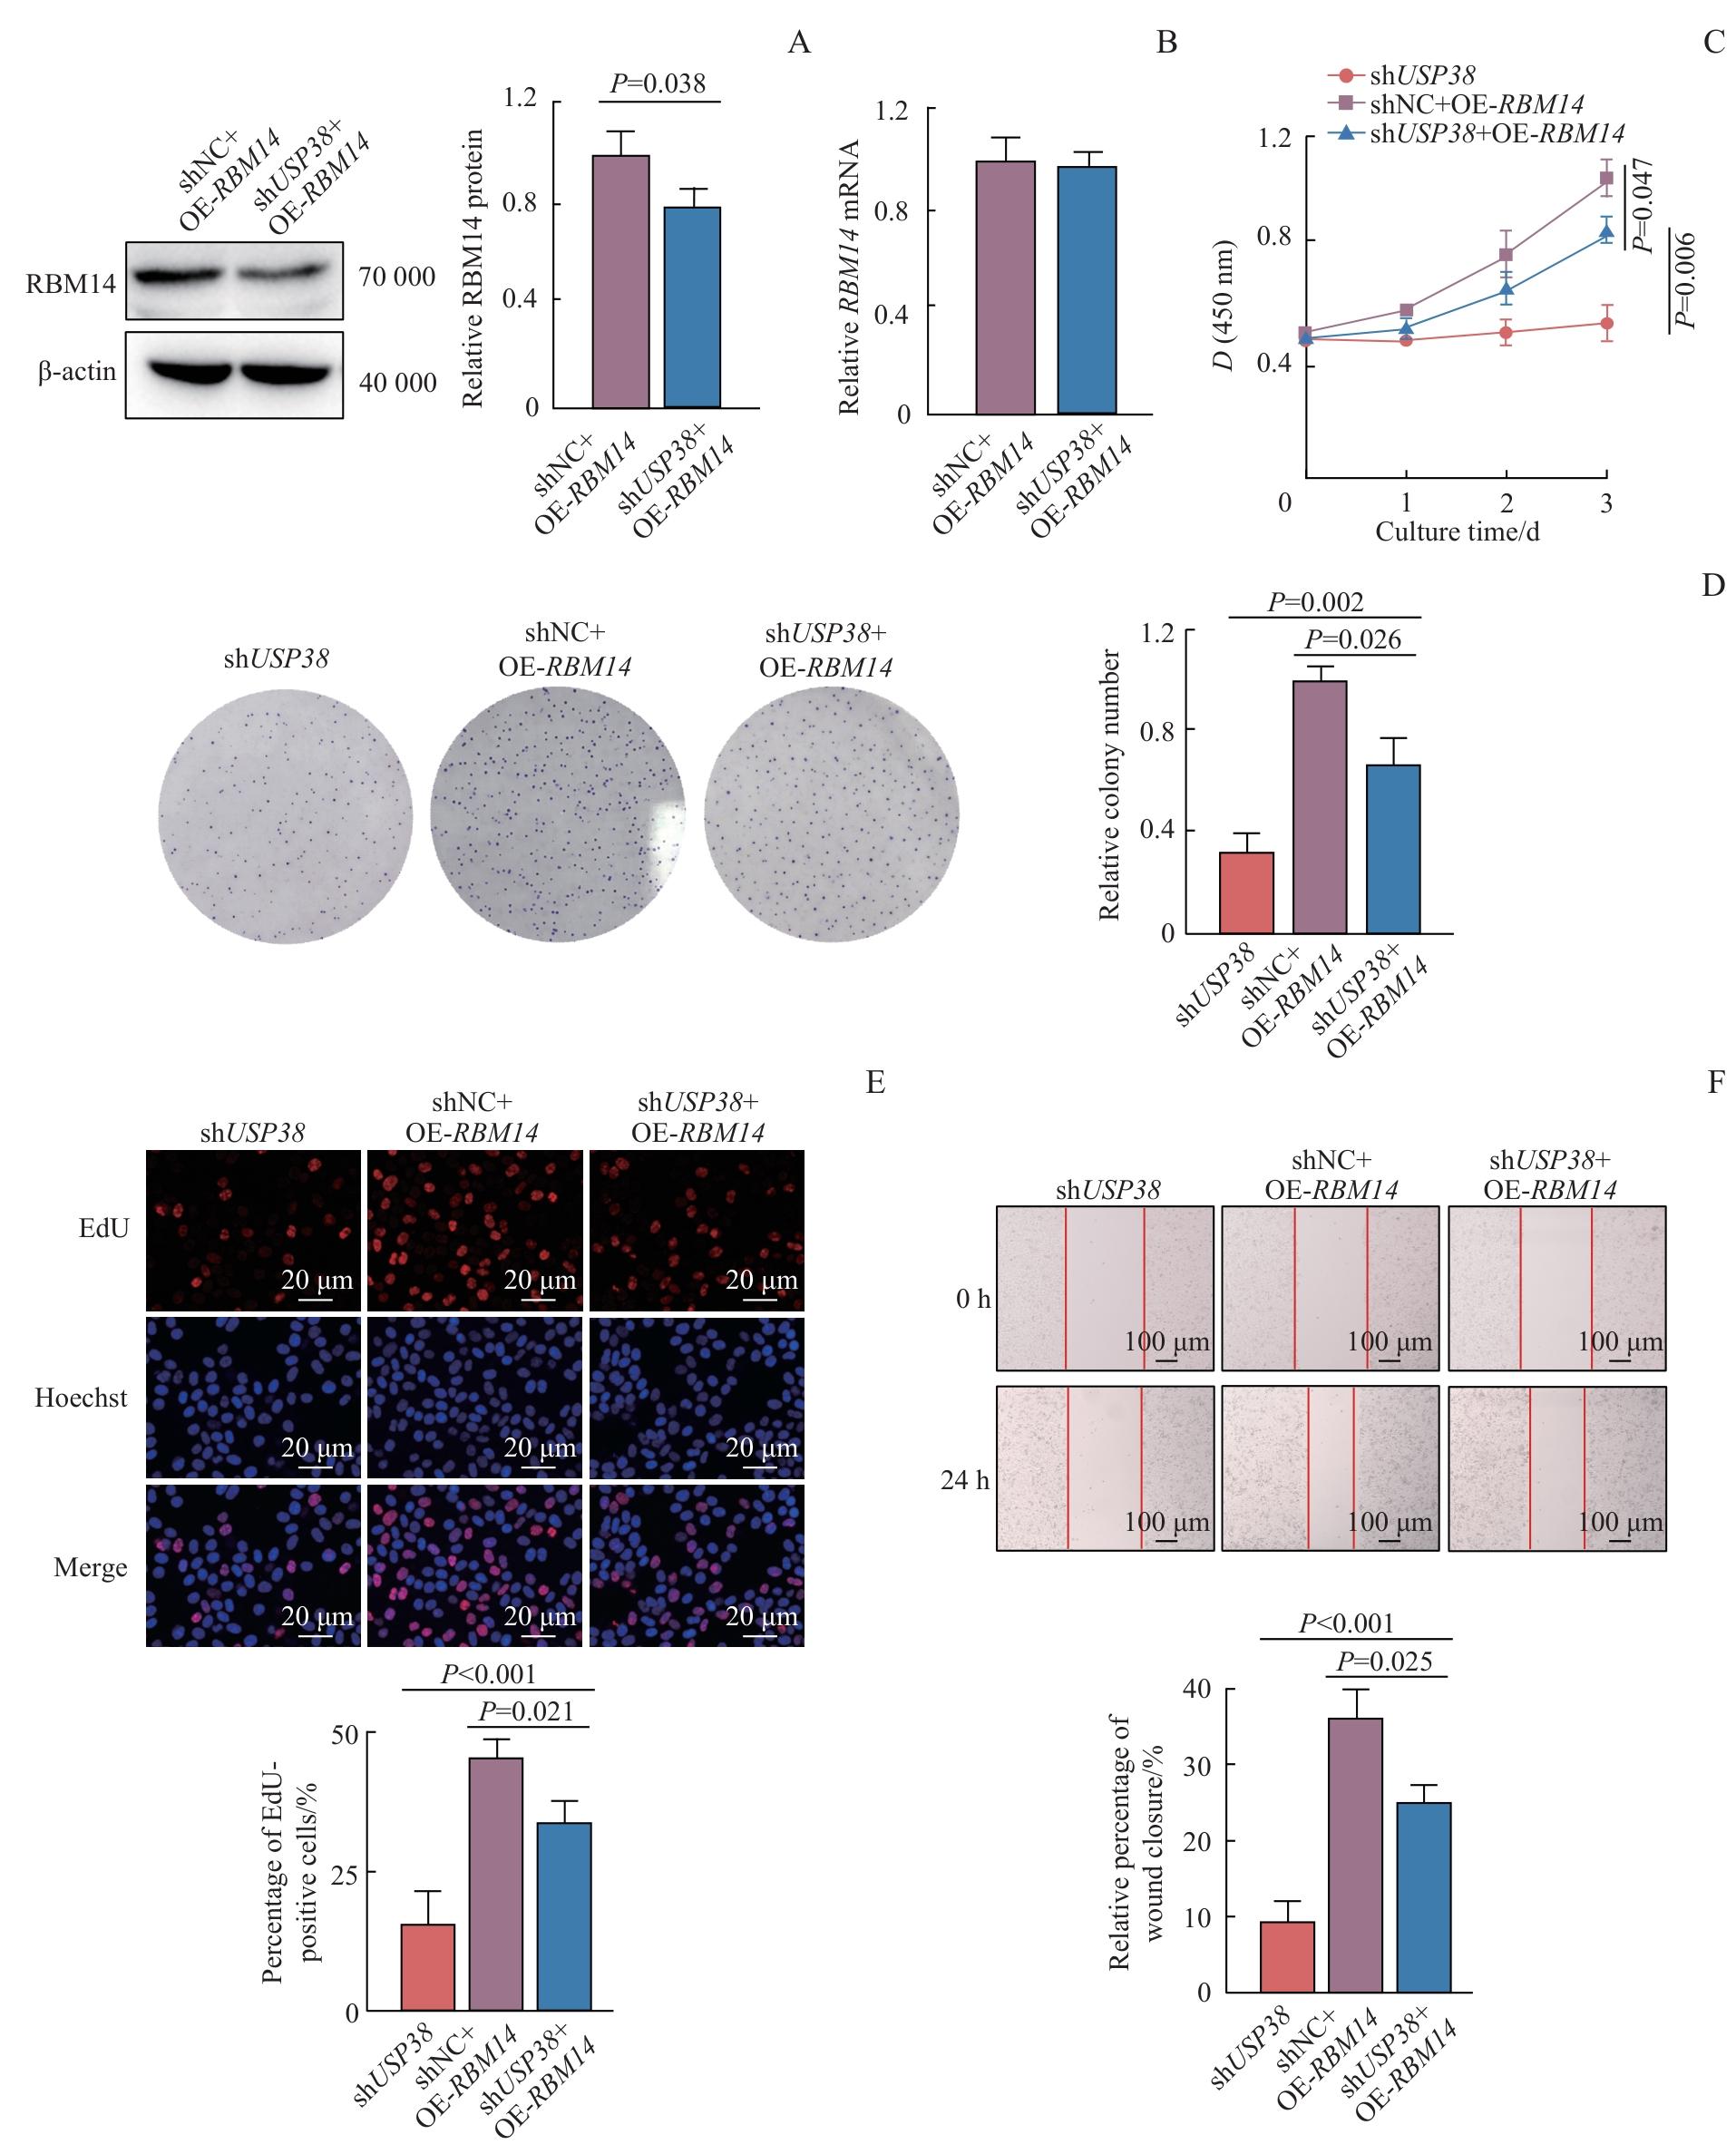
图7
USP38通过稳定RBM14蛋白对胃癌细胞增殖迁移的促进作用
Note: A. Validation of RBM14 overexpression efficiency in shUSP38 cells by Western blotting. B. qPCR analysis of the effect of USP38 knockdown on RBM14 mRNA expression in gastric cancer cells. C. CCK-8 assay showing the rescue effect of RBM14 overexpression on the inhibition of cell proliferation induced by USP38 knockdown. D. Colony formation assay assessing the rescue effect of RBM14 overexpression on the clonogenic capacity of shUSP38 cells. E. EdU assay showing that RBM14 overexpression rescues the proliferation defect caused by USP38 knockdown. F. Wound healing assay assessing the rescue effect of RBM14 overexpression on cell migration. Data are presented as mean±SD. Comparisons were performed between the shUSP38+OE-RBM14 group and the shNC+OE-RBM14 group or the shUSP38 group.
Fig 7
Promotive effect of USP38 on the proliferation and migration of gastric cancer cells via stabilizing RBM14 protein
3 讨论
USP38作为泛素特异性蛋白酶USP家族的成员,在不同肿瘤中的功能具有异质性。本研究证实了USP38在胃癌中发挥促癌作用,与在膀胱癌[13]和肺腺癌[16]等的报道一致,但其背后的底物特异性值得深究。在膀胱癌中,USP38通过稳定RNA甲基化酶METTL14促进肿瘤进展;而本研究发现的新底物RBM14同样是一类关键的RNA结合蛋白,提示USP38能通过稳定不同的RNA结合蛋白来重塑肿瘤的转录后调控图谱。相比METTL14侧重于m6A修饰,RBM14更多参与RNA剪接与核斑点组装,这解释了为何本研究生物信息学分析中RNA剪接通路呈高富集。在结直肠癌和肾癌中,USP38通过稳定组蛋白去乙酰化酶(histone deacetylase,HDAC)家族发挥抑癌作用[14-15]。然而在胃癌中,生物信息学分析显示USP38与HDAC的相关性弱于SMARCA5等染色质重塑因子。这种底物选择性的差异可能源于胃癌中特定的辅因子环境,使得USP38优先选择驱动细胞周期的因子作为底物,而非抑癌性的表观调控因子。既往研究[17]报道USP38在胃癌中通过稳定MDM2间接抑制p53。本研究蛋白质印迹法结果显示敲低USP38后p53显著上调,这在验证先前研究的同时也提出了新的问题:RBM14作为转录共激活因子,是否也参与对p53靶基因的转录调控?我们推测,USP38一方面可能通过MDM2直接降解p53蛋白,另一方面通过RBM14介导的转录调控或RNA剪接削弱p53的抑癌效应。
本研究系统阐明了USP38促进胃癌进展的分子机制。临床样本分析显示,USP38在胃癌组织中显著高表达,且与患者不良预后密切相关。本研究发现USP38高表达与胃癌患者的晚期病理分期(Ⅲ、Ⅳ期)相关,而未检测到与淋巴结转移(N)或远处转移(M)的显著关联。这一看似不一致的结果实际上反映了病理分期的综合性质。淋巴结转移和远处转移是复杂的多步骤过程,受肿瘤微环境、免疫监视、淋巴管生成等多种因素调控。USP38可能参与了侵袭的早期步骤,但在TCGA的横断面数据中(表1),由于大部分纳入患者(93.3%)并无远处转移,不一定完全反映USP38与转移的相关性。功能实验在同质遗传背景和微环境下进行,排除了人体内及治疗过程等复杂因素的干扰,因而能够在理想状态下探究生物学功能,证实敲低USP38显著抑制胃癌细胞的增殖与迁移。细胞层面的促迁移功能与临床数据间的差异,恰恰揭示了USP38在胃癌进展不同阶段的功能权重可能存在偏向性。未来可通过分析转移灶中USP38的表达水平或使用原位种植转移模型进一步验证。
GSEA结果揭示USP38高表达组E2F靶点与G2/M检查点信号同步激活,从转录组水平明确了USP38驱动胃癌细胞增殖的特征。尽管通常认为G2/M检查点的激活与周期阻滞相关,但该通路的富集也代表了G2/M期转换因子如周期蛋白B1(cyclin B1,CCNB1)、周期蛋白依赖性激酶1(cyclin-dependent kinase 1,CDK1)及DNA拓扑异构酶Ⅱα(DNA topoisomerase Ⅱ ɑ,TOP2A)等的丰度上调[21]。在本研究中,虽然涉及检查点激活及E2F信号上调等多种因素,但其综合作用在胃癌复杂网络中的具体影响尚不完全清楚。然而,功能实验证实USP38显著促进胃癌进展,提示USP38可能通过维持相关底物蛋白的稳定性,参与复杂的信号调控,介导细胞周期从S期向G2/M期推进,从而表现出促细胞增殖作用。高度活跃的细胞周期必然产生大量能量需求,本研究观察到氧化磷酸化通路的显著下调,提示USP38参与诱导细胞从氧化磷酸化向无氧糖酵解的代谢模式转变。肿瘤细胞通过牺牲单位ATP的产生效率,换取糖酵解途径中丰富的碳源前体,进而为RBM14和E2F介导的增殖提供物质支撑。这意味着USP38高表达可能伴随肿瘤细胞代谢重塑的瓦尔堡效应[22],以满足细胞快速分裂所需的物质基础。
在临床转化方面,USP38展现出作为胃癌生物标志物及治疗靶点的潜力。本研究发现USP38表达水平与临床病理分期呈显著正相关,且与增殖标志物MKI67及免疫检查点PD-L1的表达高度同步,提示检测USP38不仅有助于胃癌患者的精准预后分层,亦可能为免疫检查点抑制剂疗效评估提供参考。目前,靶向去泛素化酶的小分子抑制剂研发已成为抗肿瘤药物领域的热点[23]。借鉴USP7抑制剂P5096[24]、USP13抑制剂Spautin-1[25]等临床前研究经验,开发靶向USP38催化结构域的特异性抑制剂,有望为克服胃癌耐药及增强免疫治疗效果提供新策略。另外,基于USP38与PD-L1表达水平的显著正相关性,靶向USP38的抑制剂联合PD-1/PD-L1免疫疗法有望成为晚期胃癌患者的潜在治疗策略。RBM14是一种定位于核斑点的核蛋白,广泛参与转录调控、RNA剪接与DNA损伤修复等过程[21]。USP38-RBM14轴的激活可能赋予胃癌细胞更强的化学治疗和放射治疗耐受能力。因此,在开发USP38特异性抑制剂时,也可以重点考察其与顺铂或放射疗法的联用效果,以期通过阻断RBM14介导的DNA修复和周期演进,打破胃癌的耐药性。然而,考虑到USP38在不同组织中的功能异质性,未来药物研发需兼顾组织特异性,以最大限度降低脱靶毒性,实现精准干预。
本研究仍存在一定局限性。首先,质谱数据[12]显示USP38具有众多潜在底物,除RBM14外,腺苷脱氨酶RNA特异性酶(adenosine deaminase acting on RNA,ADAR)、甲状腺激素受体相关蛋白3(thyroid hormone receptor-associated protein 3,THRAP3)等蛋白亦表现出较强结合潜能,后续研究需在胃癌中进一步解析这些候选底物的功能效应。其次,本研究主要在细胞水平验证USP38的促癌功能,其体内的生物学效应仍需动物实验确证。后续拟通过裸鼠皮下成瘤及肺转移模型,系统评估USP38对胃癌生长及转移的调控作用。此外,GSEA分析提示USP38可能参与干扰素响应通路重塑,且其表达与PD-L1呈显著正相关,提示其或可通过调控肿瘤免疫微环境介导免疫逃逸,有待在免疫健全荷瘤小鼠模型中验证。最后,USP38在胃癌中异常高表达的上游调控机制尚不明确。未来研究可聚焦于转录因子调控及表观遗传学修饰如DNA甲基化对其表达的影响,以完善分子调控网络。鉴于RBM14在RNA剪接中的作用,USP38-RBM14轴是否可能通过影响PD-L1 mRNA稳定性参与免疫抑制,亦值得深入探究。
综上所述,本研究证实USP38通过稳定RBM14蛋白在胃癌中发挥促癌作用,并可能参与细胞周期进程、代谢重编程及免疫逃逸等通路驱动胃癌恶性进展。USP38可作为胃癌诊疗的潜在靶点,其调控网络解析及靶向药物研发值得在未来研究中进一步深化。
参考文献


